
কোয়ারসেটিন আয়রন অক্সাইড ন্যানো পার্টিকেল পার্ট 1 দ্বারা প্ররোচিত নিউরোটক্সিসিটি হ্রাস করে
Mar 15, 2022
অনুগ্রহ করে যোগাযোগ করুনoscar.xiao@wecistanche.comআরও তথ্যের জন্য
পটভূমি
ন্যানোমেটেরিয়াল শব্দটি ন্যানোস্কেলে (1-100 এনএম) এক, দুই বা তিনটি বাহ্যিক মাত্রার উপাদানকে বোঝায়, যেখানে ন্যানো পার্টিকেল (এনপি) শব্দটি ন্যানোস্কেলে তিনটি বাহ্যিক মাত্রার উপাদানকে বোঝায় [1]। এনপিগুলির সবচেয়ে গুরুত্বপূর্ণ বৈশিষ্ট্যগুলি হল উচ্চ পৃষ্ঠ থেকে ভর অনুপাত, অনুঘটক কার্যকলাপ, বৈদ্যুতিক এবং তাপ পরিবাহিতা, উচ্চ দ্রবণীয়তা এবং শরীরের টিস্যুতে গতিশীলতা [2]। বায়োমেডিসিন এনপিগুলির দুটি সাধারণ বিভাগ রয়েছে। (I) জৈব NPs প্রধানত জৈব অণু গঠিত হয়. লাইপোসোম, ইমালশন, ডেনড্রাইমার, এবং অন্যান্য পলিমারগুলি জৈব NPs-এর একটি বৃহৎ গোষ্ঠী গঠন করে।(II)অজৈব এনপি যা একটি ধাতব কোর যেমন লোহা, নিকেল, কোবাল্ট, সোনা, সিলিকা, এবং লোহার অক্সাইড সহ বৈদ্যুতিক, চৌম্বকীয়, অপটিক্যাল, এবং ফ্লুরোসেন্ট বৈশিষ্ট্য [3]. আয়রন অক্সাইড ন্যানো পার্টিকেল (IONPs) হল এক শ্রেণীর চৌম্বকীয় ন্যানো পার্টিকেল (MNPs) যা প্রযুক্তিগত অগ্রগতিতে প্রাধান্য পেয়েছে [4,5]। IONP সাধারণত তৈরি হয়) কোর এবং বা ম্যাগনেটাইট (FeO) বা ম্যাঘেমাইট (y-Fe, O3) a প্রতিরক্ষামূলক আবরণ যেমন চিটোসান, ডেক্সট্রান, পলিথিন গ্লাইকোল (পিইজি), এবং পলিভিনাইল অ্যালকোহল (পিভিএ)[6-8]। আইওএনপিগুলির অনন্য বৈশিষ্ট্য রয়েছে যা তাদের চিকিৎসা অ্যাপ্লিকেশনের জন্য উপযুক্ত জৈব উপাদান তৈরি করে। উদাহরণস্বরূপ, তাদের ফেরো-বা ফেরোম্যাগনেটিক আচরণ মাদক পাচার এবং টার্গেট টিস্যুতে ড্রাগ নির্দেশিকা সক্ষম করে। এগুলিকে একটি বাহ্যিক চৌম্বক ক্ষেত্রের অধীনে নির্দিষ্ট টিস্যুতে স্থানীয়করণ করা যেতে পারে যাতে তাদের বলা হয় চৌম্বকীয় লক্ষ্যযুক্ত বাহক (MTC)[9]। তদুপরি, চৌম্বকীয় অনুরণন ইমেজিং (এমআরআই) এ IONPs এর প্রয়োগ উচ্চ বৈপরীত্য চিকিৎসা চিত্র তৈরি করার জন্য একটি শক্তিশালী হাতিয়ার এবং রোগ নির্ণয়ের সম্ভাবনা বাড়ায় [6,10]।
এছাড়াও, IONPs টিউমার তাপমাত্রা (হাইপারথার্মিয়া) বৃদ্ধির মাধ্যমে ক্যান্সার কোষগুলিকে বিকিরণ এবং কেমোথেরাপির জন্য আরও সংবেদনশীল করে তুলতে পারে। অধিকন্তু, রক্ত-মস্তিষ্কের বাধা (BBB) অতিক্রম করার জন্য IONPs-এর ক্ষমতা স্নায়বিক ব্যাধিতে [6-8] মস্তিষ্কে ওষুধ পরিবহনের জন্য একটি বিশেষ সুবিধাপ্রাপ্ত সম্পত্তি। বর্তমানে, ক্লিনিকে ব্যবহারের জন্য এবং অন্যান্যদের ক্লিনিকাল ট্রায়ালের মধ্য দিয়ে প্রযোজ্য আইওএনপি-র পাশাপাশি অসংখ্য এফডিএ-অনুমোদিত SPION যৌগ (ফেরুমক্সাইড (ফেরিডেক্স IV), ফেরুমক্সিটল (লুমিরেম) এবং ফেরুমক্সিটল (ফেরাহেম) রয়েছে। , চলমান আছে। উপরে উল্লিখিত সুবিধা থাকা সত্ত্বেও, ইন ভিট্রো এবং ভিভো গবেষণায় বিনামূল্যে আয়রন সঞ্চয়, ROS উৎপাদন, এবং প্রোটিন একত্রিতকরণ [11-14] এর কারণে IONP-এর সম্ভাব্য নিউরোটক্সিসিটি সম্পর্কিত প্রমাণ দেওয়া হয়েছে। যাইহোক, এনপিএসের ভৌত রাসায়নিক বৈশিষ্ট্য যেমন ঘনত্ব, আকার এবং পৃষ্ঠ আবরণ পরিবর্তন করা তাদের কার্যকারিতা এবং সাইটোটক্সিসিটি বৈশিষ্ট্যগুলিকে অপ্টিমাইজ করতে পারে [14]। এছাড়াও, কোয়ারসেটিন (QC) সম্পূরক হিসাবে প্রাকৃতিক অ্যান্টিঅক্সিডেন্টগুলির একযোগে ব্যবহার IONPs[15] এর কারণে মস্তিষ্কের অক্সিডেটিভ ক্ষতিগুলি দূর করার জন্য একটি কার্যকর পথ হতে পারে। QC(3,3',4',5,7-পেন্টাহাইড্রক্সি ফ্ল্যাভোন) C15H10O7[16] এর রাসায়নিক সূত্র সহ ফ্ল্যাভোনয়েড শ্রেণীর এবং ফ্ল্যাভোনল সাবক্লাসের অন্তর্গত। QC অনেক ফল, বীজ, শাকসবজি এবং বাদামের একটি প্রধান উপাদান। QC এর উপকারী প্রভাবগুলি ক্যান্সার এবং নিউরোডিজেনারেটিভ রোগের মতো অনেক ব্যাধিতে তদন্ত করা হয়েছে [17, 18]। QC একাধিক আণবিক পথের মাধ্যমে নিউরোডিজেনারেটিভ রোগ স্থগিত বা প্রতিরোধ করতে পারে [16, 19]। QC প্রতিক্রিয়াশীল অক্সিজেন এবং/অথবা নাইট্রোজেন প্রজাতির (ROS/RNS) সাথে আবদ্ধ হওয়ার মাধ্যমে এবং এনজাইমেটিক/নন-এনজাইমেটিক অ্যান্টিঅক্সিডেন্টগুলির অভিব্যক্তি এবং কার্যকলাপের উপর এর প্রভাবের মাধ্যমে অক্সিডেটিভ স্ট্রেসের অবস্থাকে সংশোধন করে[15, 20]। QC স্থিতিশীল আয়রন-QC কমপ্লেক্স তৈরি করে ফেন্টন প্রতিক্রিয়া প্রতিরোধ করে, যার ফলে পরোক্ষভাবে ROS/RNS [18] অপসারণ করা হয়। অধিকন্তু, আয়রন ওভারলোড অবস্থায় QC, আয়রন হোমিওস্টেসিস নিয়ন্ত্রণ করতে পারে [২১]। কম দ্রবণীয়তা, অস্থিরতা এবং কম জৈব উপলভ্যতার কারণে QC ভালভাবে BBB অতিক্রম করতে পারে না[20]। IONPs এর ব্যবহার এই সীমাবদ্ধতাগুলি অতিক্রম করার জন্য একটি কার্যকর সমাধান [22]। অতএব, IONPs-এর সাথে QC একত্রিত করা লোহার বিষাক্ততা নিরপেক্ষ করতে এবং QC জৈব উপলভ্যতা বাড়ানোর জন্য একটি পারস্পরিক উপকারী সমাধান। IONPs-প্ররোচিত নিউরোটক্সিসিটির বিরুদ্ধে QC এর উপকারী প্রভাবগুলি খারাপভাবে সংজ্ঞায়িত করা হয়েছে। এই পর্যালোচনাতে, আমরা প্রমাণ সরবরাহ করি যে QC আয়রন ওভারলোড-প্ররোচিত বিষাক্ততার বিরুদ্ধে কাজ করতে পারে। এই আয়রন ওভারলোড IONPs বিপাক বা অন্যান্য উত্সের কারণে হতে পারে। যাইহোক, বিভিন্ন উত্স থেকে উদ্ভূত অতিরিক্ত লোহাকে নিরপেক্ষ করার জন্য QC-এর সম্ভবত সমান কার্যকলাপ রয়েছে।
Cistanche অ্যালঝাইমার রোগ প্রতিরোধ করতে পারে
আয়রন বিপাক এবং হোমিওস্টেসিস
আমাদের শরীরের আয়রন অনেক মৌলিক প্রক্রিয়া যেমন অক্সিজেন পরিবহন এবং মাইটোকন্ড্রিয়াল ফাংশনের জন্য একটি অপরিহার্য খনিজ। আয়রন, একটি সহ-ফ্যাক্টর হিসাবেও, ডিএনএ প্রতিলিপি, আরএনএ প্রতিলিপি, প্রোটিন অনুবাদ, এবং মাইলিন সংশ্লেষণ সহ এনজাইমেটিক প্রতিক্রিয়াগুলিতে অংশগ্রহণ করে [২৩,২৪]। মানবদেহে প্রায় 3-4 গ্রাম আয়রন থাকে যা শারীরবৃত্তীয় এবং রোগগত অবস্থার অধীনে প্রতিদিন 0.1 শতাংশ পর্যন্ত হারাতে পারে যা সাধারণত প্রতিদিনের খাদ্য গ্রহণের সাথে ক্ষতিপূরণ পায় [25]। আয়রনের ঘাটতি এবং আয়রন ওভারলোড উভয়ই ভ্রূণ থেকে প্রাপ্তবয়স্ক [26-28] মস্তিষ্কের বিকাশ এবং কার্যকারিতাকে প্রভাবিত করতে পারে। প্রতিদিনের খাবারে লোহার দুটি রূপ রয়েছে: শোষণযোগ্য লৌহঘটিত আয়ন (Fe2) সহ হিম আয়রন যা লাল মাংস এবং সামুদ্রিক খাবারে থাকে এবং ফেরিক আয়ন (Fe3 প্লাস) সহ নন-হিম আয়রন যা উদ্ভিদ-ভিত্তিক খাবারে বিদ্যমান [২৯,৩০ ]। আয়রন শোষণ শরীরের আয়রনের মাত্রা এবং একাধিক আয়রন নিয়ন্ত্রক এজেন্টের মাধ্যমে নিয়ন্ত্রণ করা যেতে পারে [27]। ডুওডেনাল সাইটোক্রোম বি(ডিসিটিবি) হল একটি অ্যাসকরবেট-নির্ভর প্লাজমা ট্রান্সমেমব্রেন ফেরিরিডাক্টেস যা অন্ত্রের শোষণকারী কোষ, এন্টারোসাইট [৩১] এর অ্যাপিক্যাল মেমব্রেনে Fe3 প্লাস থেকে Fe2 প্লাসে স্থানান্তরিত করে। লোহা ধাতব পরিবহনকারীর মাধ্যমে কোষে প্রবেশ করে [৩২]। ডিভালেন্ট মেটাল ট্রান্সপোর্টার 1(DMT1) এবং হিম ক্যারিয়ার প্রোটিন 1 (HCP1) হল প্রধান নন-হিম এবং হিম আয়রন ট্রান্সপোর্টার। তারা অন্ত্রের লুমেন থেকে Fe2 প্লাস এবং হিমকে এন্টারোসাইটগুলিতে স্থানান্তর করতে পারে [২৯,৩০,৩২]। HCP1 হল উচ্চ-সম্পর্কীয় বাধ্যতামূলক ফোলেট ট্রান্সপোর্টার [৩৩]। পরবর্তী ধাপে, হিম অক্সিজেনেস দ্বারা ক্ষয়প্রাপ্ত নন-হিম এবং হিম আয়রন থেকে উদ্ভূত Fe2 প্লাস-1(HO-1)লেবিল আয়রন পুলে (LIP), একটি ক্ষণস্থায়ী আন্তঃকোষীয় আয়রন পুলে প্রবেশ করে[23]। এই Fe2 প্লাসের অধিকাংশই এন্টারোসাইটের বেসোলেটারাল মেমব্রেনে আয়রন রপ্তানিকারক ফেরোপোর্টিন দ্বারা কোষ থেকে নির্গত হয় [৩৪]। এর উদ্বৃত্ত সাইটোসোলিক আয়রন-স্টোরেজ প্রোটিনে স্থানান্তরিত হয় যার নাম ফেরিটিন। অন্ত্রের ফেরিটিন লোহা শোষণের একটি কার্যকরী কারণ এর H সাবইউনিটের ফেরোক্সিডেস কার্যকলাপের কারণে যা Fe2 প্লাস থেকে Fe3 প্লাসকে পুনরায় অক্সিডাইজ করে [২৩,৩৫,৩৬]।অন্যদিকে, এন্টারোসাইট থেকে নিঃসৃত আয়রন পুনরায় অক্সিডাইজ করা হয়। Ferroxidases দ্বারা Fe3 প্লাস (অর্থাৎ, ঝিল্লি-বাউন্ড মাল্টিকপার হেফেস্টিন এবং দ্রবণীয় এবং/ঝিল্লি-বাউন্ড মাল্টিকপার সেরুলোপ্লাজমিন), যা ফেরোপোর্টিন দ্বারা লোহা রপ্তানির সাথে জড়িত [37, 38]। প্লাজমা আয়রন-মুক্ত ট্রান্সফারিন, তথাকথিত অ্যাপো-ট্রান্সফারিন (Apo-Tf) দ্বারা লোহা স্থানান্তরের জন্য আয়রন অক্সিডেশন অপরিহার্য। ফেরিটিন এবং ট্রান্সফারিনের মতো আয়রন-স্টোরেজ প্রোটিন দ্বারা Fe3 প্লাসকে আটকে রাখা এবং ধরে রাখা Fe3 প্লাস প্রতিক্রিয়াশীলতা এবং ফ্রি র্যাডিক্যাল জেনারেশনকে দমন করে[39]। Apo-Tf রক্তরসের স্বাভাবিক ক্ষারীয় pH(7.4) এ দুটি ফেরিক আয়নের সাথে আবদ্ধ হয়ে হলো-ট্রান্সফারিন (Holo-Tf) গঠন করে। প্লাজমা আয়রন পুল হিসাবে এই আয়রন-লোডেড গ্লাইকোপ্রোটিন অস্থি মজ্জা, লিভার এবং মস্তিষ্কের মতো লক্ষ্য টিস্যুতে লোহা সরবরাহ করে [25,40, 41](চিত্র 1)। হেপাটোসাইট এবং ম্যাক্রোফেজ যথাক্রমে লোহা সঞ্চয় এবং লোহা পুনর্ব্যবহারের জন্য দায়ী [৪২]। শারীরবৃত্তীয় অবস্থার অধীনে, প্রায় পুরো

বহির্মুখী আয়রন ট্রান্সফারিন-বাউন্ড আকারে লক্ষ্য কোষে প্রবেশ করে। যাইহোক, লোহার ওভারলোডের কারণে ট্রান্সফারিন স্যাচুরেশন ট্রান্সফারিনের সাথে লোহা বাঁধাই প্রতিরোধ করে এবং নন-ট্রান্সফারিন বাউন্ড আয়রন (NTBI) গ্রহণের দিকে পরিচালিত করে [43]। Holo-Tf বেশিরভাগ কোষের পৃষ্ঠে ট্রান্সফারিন রিসেপ্টর (TfR) এর সাথে আবদ্ধ হয়[44]। Holo-Tf-TfR কমপ্লেক্সটি ক্ল্যাথ্রিন-কোটেড ভেসিকলের মাধ্যমে এন্ডোসাইটোসিস চক্রে অ্যাডাপ্টার প্রোটিন 2(AP2) সহ ক্ল্যাথ্রিন-মিডিয়েটেড এন্ডোসাইটোসিস (CME) [45,46] নামে কোষে অভ্যন্তরীণ করা হয়। এন্ডোসাইটিক ভেসিকলগুলি তাদের ক্ল্যাথ্রিন আবরণ হারায় এবং পরবর্তীকালে এন্ডোসোম মেমব্রেনে একত্রিত হয় [45, 47]। লেট এন্ডোসোমের অম্লীয় pH(5.5-6.0) তে Fe প্লাস একটি ট্রান্সফারিন-টিআর কমপ্লেক্স থেকে মুক্তি পায় যখন, ট্রান্সফারিন টিএফআর-এ আবদ্ধ থাকে এবং এপো-টিএফ-এ পুনরায় রূপান্তরিত হয়। এছাড়া, এন্ডো-সোমাল ফেরিরিডাক্টেস যেমন6-প্রোস্টেটের ট্রান্সমেমব্রেন এপিথেলিয়াল অ্যান্টিজেন (স্টেপ) অদ্রবণীয় Fe3 প্লাসকে দ্রবণীয় Fe2 প্লাস থেকে কমিয়ে দেয় যা এন্ডোসোমাল লুমেন থেকে সাইটোসোলে DMT1 দ্বারা পরিবাহিত হয়। কোষের পৃষ্ঠে পুনর্ব্যবহৃত হয় এবং 7.4 এর pH এ রিসেপ্টর থেকে বিচ্ছিন্ন হয় [38,47-50]। এখানে, TfR পরবর্তী Holo-Tf আবদ্ধ করতে এবং পুনর্ব্যবহার শুরু করতে প্রস্তুত [51]। সাইটোসোলিক আয়রন বিভিন্ন পথের মুখোমুখি হয়: (I) মেটালোপ্রোটিনের মধ্যে এম্বেড করে জৈবিক ক্রিয়াকলাপে অংশগ্রহণ, (I) মাইটোকন্ড্রিয়াল এনার্জি ট্রান্সডাকশনে অংশগ্রহণ, (II) ফেরিটিন আকারে স্টোরেজ [48,52]। এছাড়াও, ফেরিটিনের লাইসোসোমাল অবক্ষয় একটি আয়রন-স্টোরেজ কমপ্লেক্স গঠনের দিকে পরিচালিত করে, যথা, হিমোসিডারিন, যা প্যাথোফিজিওলজিকাল অবস্থার সাথে সম্পর্কিত (যেমন, আয়রন ওভারলোড) এবং একটি প্রতিক্রিয়াশীল ফ্রি র্যাডিকাল প্রজন্মের সাথে জড়িত [30,48]।
আয়রন হোমিওস্ট্যাসিস হেপসিডিন হরমোন এবং আয়রন-নিয়ন্ত্রক প্রোটিন (IRP1 এবং IRP2)/আয়রন-প্রতিক্রিয়াশীল উপাদান (IRE) সংকেত পথ [42] এর মতো একাধিক কারণ দ্বারা রক্ষণাবেক্ষণ করা হয়। হেপসিডিন, যা লিভার দ্বারা উত্পাদিত হয়, একটি অপরিহার্য পদ্ধতিগত নিয়ন্ত্রক। যখন আয়রন প্রচুর থাকে, তখন হেপসিডিন এন্টারোসাইট ফেরোপোর্টিনকে আবদ্ধ করে এবং কোষের বাইরে লোহার রপ্তানিকে ব্লক করে [৩৫,৪২]। সেলুলার স্তরে, IRP/IRE সিগন্যালিং পাথওয়ে শরীরের আয়রনের ঘনত্বের উপর নির্ভর করে আয়রন হোমিওস্ট্যাসিস নিয়ন্ত্রণ করে। আয়রনের ঘাটতিতে, IRP তাদের mRNA-এর অনুবাদ দমন করতে ফেরোপোর্টিন এবং ফেরিটিন ট্রান্সক্রিপ্টের 5'-অঅনুবাদিত অঞ্চলে (5'UTR) IRE মোটিফের সাথে আবদ্ধ হয়। যেখানে, 3′-UTR অফ এবং DMT1 ট্রান্সক্রিপ্টে IRE মোটিফের সাথে IRP-এর আবদ্ধতা অনুবাদ উন্নত করতে তাদের mRNA গুলিকে স্থিতিশীল করে। এই প্রক্রিয়াগুলি বিপাকীয় প্রক্রিয়াগুলিতে ব্যবহারের জন্য প্লাজমা আয়রন হ্রাস এবং সেলুলার আয়রনের বৃদ্ধির দিকে পরিচালিত করে [50]। বিপরীতে, যখন আয়রন প্রচুর থাকে, তখন IRP ফেরোপোর্টিন এবং ফেরিটিন ট্রান্সক্রিপ্টের 5'UTR-এ IRE মোটিফের সাথে আবদ্ধ হতে পারে না এবং তাদের mRNA-এর অনুবাদকে উন্নত করতে পারে এবং সেইসাথে IRP TfR-এর 3'-UTR-তে IRE মোটিফের সাথে আবদ্ধ হতে পারে না। এবং DMT1 অনুবাদকে দমন করতে mRNA গুলিকে প্রতিলিপি করে এবং অস্থিতিশীল করে তোলে [53]।
মস্তিষ্কে আয়রন
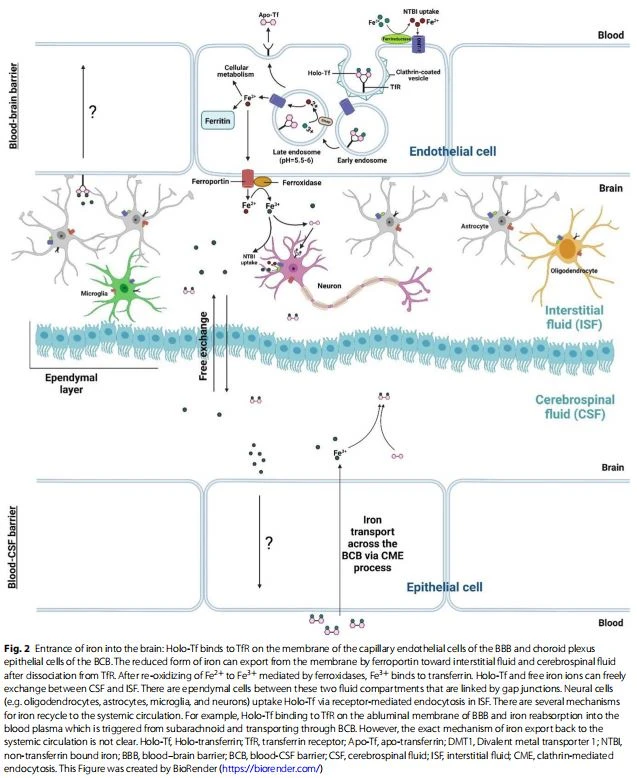
নিউরোডিজেনারেটিভ রোগ এবং অস্বাভাবিক আয়রন বিপাকের মধ্যে উল্লেখযোগ্য প্রাসঙ্গিকতার কারণে, সিএনএসে লোহার ভাগ্যের একটি সঠিক বিবরণ প্রয়োজন [৪৮]। কোষ বিভাজন, শক্তি উৎপাদন, অ্যাক্সন মাইলিনেশন, ডেনড্রাইটিক ব্রাঞ্চিং, এবং ডোপামিন এবং সেরোটোনিন [২৪,53-55] এর মতো নিউরোট্রান্সমিটার সংশ্লেষণ সহ সিএনএস-এর আয়রন অনেকগুলি স্বাভাবিক স্নায়বিক কার্যে অপরিহার্য ভূমিকা পালন করে। আয়রন টাইরোসিন হাইড্রোক্সিলেসের একটি সহ-ফ্যাক্টর যা ডোপামিন সংশ্লেষণে জড়িত এবং ট্রিপটোফান হাইড্রোক্সিলেস যা সেরোটোনিন সিন-থিসিসে জড়িত [54]। ডোপামাইন হল মস্তিষ্কের এক ধরনের ক্যাটেকোলামাইন যা হিপ্পোক্যাম্পাসের নির্দিষ্ট এলাকায়, সম্ভবত সিএএল অঞ্চলে নির্গত হতে পারে এবং দীর্ঘমেয়াদী শক্তি বৃদ্ধি করে (LTP)[56]। আয়রনের ঘাটতি মায়লিন সংশ্লেষণের হ্রাসের সাথে যুক্ত, যা গ্লিয়াল কোষগুলি অর্থাৎ অলিগোডেন্ড্রোসাইটের দ্বারা গঠিত হয়, যার ফলে স্মৃতিশক্তি দুর্বল হওয়ার মতো পরিণতি হয় [57]। রক্ত-মস্তিষ্কের বাধা (BBB) এবং রক্ত-CSF বাধা (BCB) দ্বারা লোহা মস্তিষ্কের কোষে পরিবাহিত হয়। বেশিরভাগ লোহা BBB অতিক্রম করে মস্তিষ্কের ইন্টারস্টিশিয়াল ফ্লুইডে (ISF) প্রবেশ করে এবং কিছু আয়রন কোরয়েড প্লেক্সাস [58] এর মধ্যে BCB অতিক্রম করে সেরিব্রোস্পাইনাল ফ্লুইড (CSF) এ প্রবেশ করে। Holo-Tf-TfR পথ হল মস্তিষ্কের দিকে লোহার সুপরিচিত রুটগুলির মধ্যে একটি [59]। উপরে উল্লিখিত অন্যান্য কোষের মতো, সঞ্চালন হল-টিএফ BBB-এর কৈশিক এন্ডোথেলিয়াল কোষ এবং BCB-এর কোরয়েড প্লেক্সাস এপিথেলিয়াল কোষগুলির ঝিল্লিতে TfR-এর সাথে আবদ্ধ হয়। এই বাঁধনের ফলে CME প্রক্রিয়ার মাধ্যমে Holo-Tf-TfR কমপ্লেক্সের সাথে কোষের ঝিল্লির উদয় হয়। লৌহের হ্রাসকৃত রূপ মস্তিষ্কের কৈশিক থেকে বিচ্ছিন্ন হওয়ার পরে ISF এবং CSF এর দিকে ফেরোপোর্টিন দ্বারা রপ্তানি করতে পারে। ফেরোক্সিডেস দ্বারা মধ্যস্থতা করে Fe2 প্লাস থেকে Fe3 পুনরায় অক্সিডাইজ করার পর, Fe3 প্লাস রিসেপ্টর-মধ্যস্থিত এন্ডোসাইটোসিসের মাধ্যমে স্নায়ু কোষ (যেমন, অলিগো-ডেনড্রোসাইট, অ্যাস্ট্রোসাইট, মাইক্রোগ্লিয়া এবং নিউরন) দ্বারা ট্রান্সফারিন এবং গ্রহণের সাথে আবদ্ধ হয় [23,24,58, 60-62]। যাইহোক, কিছু লোহা NTBI আকারে গ্রহণ করতে পারে, সম্ভবত DMT1 [59] দ্বারা Fe3 প্লাস থেকে Fe2 প্লাস ফেরি-রিডাক্টেস [63](চিত্র 2) দ্বারা হ্রাস করার পরে। নিউরন দ্বারা আয়রন গ্রহণের মধ্যে রয়েছে ট্রান্সফারিন-বাউন্ড আয়রন এবং এনটিবিআই। আয়রনের ঘাটতিতে নিউরনে TfR-এর আপগ্র্যুলেশন, এই রিসেপ্টরের মাধ্যমে ব্যাপক ট্রান্সফারিন-বাউন্ড আয়রন গ্রহণের পরামর্শ দেয় [64]। নিউরন এবং অন্যান্য কোষের প্রকারগুলি সম্ভবত DMT1 এর মাধ্যমে NTBI অর্জন করে। যাইহোক, NTBIuptake এর প্রক্রিয়াটি সুনির্দিষ্টভাবে স্পষ্ট করা হয়নি [65]। নিউরনে আয়রন রপ্তানিকারী ফেরোপোর্টিনের মতোই যা কোষের ঝিল্লি জুড়ে প্রকাশিত হয়। আয়রন-স্টোরেজ প্রোটিন হিসাবে ফেরিটিন কিছু নিউরনেও পাওয়া গেছে [64](যেমন, ডোপামিনার্জিক নিউরন)[66]। আয়রন নিউরনের সিন্যাপটিক স্পেসেও উপস্থিত থাকে, যা অ্যাক্সন টার্মিনাস থেকে নির্গত হয় [24]। পদ্ধতিগত সঞ্চালনে লোহা পুনর্ব্যবহারের জন্য বিভিন্ন প্রক্রিয়া রয়েছে। উদাহরণস্বরূপ, BBB-এর আবলুমিনাল মেমব্রেনে TfR-এর সাথে Holo-Tf আবদ্ধ, এবং arachnoid granulations-মিডিয়াটেড পরিবহনকে মস্তিষ্ক থেকে সঞ্চালনে লোহা রপ্তানি করার একটি প্রক্রিয়া হিসাবে প্রস্তাব করা হয়েছে [67]। প্যাথলজিকাল বা বার্ধক্যজনিত অবস্থার কারণে অতিরিক্ত আয়রনও সিস্টেমিক সঞ্চালনে ফিরে আসে। Moos et al., পার্শ্বীয় ভেন্ট্রিকলগুলিতে 5Fe এবং 12I দিয়ে রেডিওলেবেলযুক্ত ট্রান্সফারিন ইনজেকশনের মাধ্যমে, রক্তের প্লাজমাতে আয়রন পুনঃশোষণের একটি প্রধান রুট প্রস্তাব করেছিলেন যা সাবরাচনয়েড থেকে শুরু হয় এবং বিসিবি [68] এর মাধ্যমে পরিবহণ হয়। তদ্ব্যতীত, ফ্যাগোসাইটোসিসের মাধ্যমে প্রদাহজনক পরিস্থিতিতে সেরিব্রাল অ্যাপোপটোটিক/নেক্রোটিক কোষের ক্লিয়ারেন্স ফ্যাগোসাইট [64] দ্বারা মস্তিষ্ক থেকে রক্তের প্লাজমাতে আয়রনের প্রবাহে অবদান রাখে। যাইহোক, পদ্ধতিগত সঞ্চালনে লোহা রপ্তানির সঠিক প্রক্রিয়াটি অস্পষ্ট এবং আরও অধ্যয়নের প্রয়োজন।
আয়রন ওভারলোড-প্ররোচিত নিউরোটক্সিসিটি
লোহা একটি রাসায়নিক উপাদান যা ইলেক্ট্রন দাতা এবং গ্রহণকারী কার্যকলাপের সাথে ট্রানজিশন ধাতুগুলির সাথে সম্পর্কিত [69]। লোহা নিউরো কার্যকারিতার একটি গুরুত্বপূর্ণ উপাদান হওয়া সত্ত্বেও, এর অতিরিক্ত প্রোটিন একত্রিতকরণ এবং অক্সিডেটিভ স্ট্রেস হতে পারে। এর সবচেয়ে ধ্বংসাত্মক প্রভাব হল নিউরোনাল কোষের মৃত্যু [14, 70]। অতএব, আয়রন হোমিওস্টেসিসের সঠিক নিয়ন্ত্রণ প্রয়োজন [69]। আয়রন জমে প্রধানত স্বাভাবিক বার্ধক্যের ক্ষেত্রে ঘটে তবে বেশ কিছু বয়স-নির্ভর/স্বাধীন কারণগুলি এর অগ্রগতির সাথে যুক্ত থাকে যার মধ্যে রয়েছে ধূমপান, উচ্চ বডি মাস ইনডেক্স (BMI)[70], বংশগত আয়রন ওভারলোড ডিজঅর্ডার (যেমন হিমোক্রোমাটোসিস)[71], ট্রান্সফিউশন-প্ররোচিত আয়রন। অ্যানিমিয়া [72] এবং নিউরোডিজেনারেটিভ রোগের [73] প্রকারে ওভারলোড। এছাড়া, রোগ নির্ণয় ও চিকিৎসায় (যেমন নিউরোডিজেনারেটিভ ডিজিজ) আইওএনপি-এর ব্যবহার আয়রন অ্যাকুইউলেশন হতে পারে[14, 15]। অতিরিক্ত লোহা প্রতিক্রিয়াগুলির একটি গুরুত্বপূর্ণ খেলোয়াড় যা ROS/RNS অতিরিক্ত উত্পাদন করে টিস্যুর ক্ষতি করে, যাকে সংক্ষেপে RONS [74, 75] বলা হয়। এই অবস্থাটি অ্যান্টিঅক্সিডেন্ট এবং প্রোক্সিডেন্টগুলির মধ্যে ভারসাম্যহীনতার দিকে পরিচালিত করে, যাকে নাইট্রোসেটিভ এবং/অথবা অক্সিডেটিভ স্ট্রেস [74] হিসাবে উল্লেখ করা হয়। আয়রন ওভারলোড এবং নাইট্রোসেটিভ স্ট্রেসের মধ্যে সম্পর্ক থাকা সত্ত্বেও, এটি পর্যাপ্তভাবে বর্ণনা করা হয়নি। অতএব, এই গবেষণায়, আমরা আয়রন ওভারলোড এবং অক্সিডেটিভ স্ট্রেসের মধ্যে সম্পর্কের উপর ফোকাস করি। অক্সিজেন এবং আয়রনের ক্রমাগত ব্যবহারের কারণে মস্তিষ্ক ROS-এর জন্য একটি সংবেদনশীল অঙ্গ, এতে উচ্চ শতাংশে পলিআনস্যাচুরেটেড ফ্যাটি অ্যাসিড (PUFAs) এবং অক্সিডেশনের উচ্চ দুর্বলতা এবং অন্যান্য টিস্যুর তুলনায় দুর্বল অ্যান্টিঅক্সিডেন্ট প্রতিরক্ষা [76]। শারীরবৃত্তীয় অবস্থার অধীনে, সেলুলার বিপাকের ফলে ROS তৈরি হয়। Fe2 প্লাসের মাধ্যমে অক্সিজেন (O) হ্রাস Fe3 এবং সুপারঅক্সাইড অ্যানিয়ন (O,) উৎপন্ন করে যা অন্যান্য প্রতিক্রিয়াশীল প্রজাতির (2Fe2 প্লাস প্লাস 2O,→2Fe প্লাস প্লাস 2O,) এর অগ্রদূত। সুপারঅক্সাইড ডিসম্যুটেজ (SOD) এনজাইম O. কে হাইড্রোজেন পারক্সাইড(H2O) এবং O2(2O2…- প্লাস 2H প্লাস →H, O2 প্লাস O2) রূপান্তরিত করে। H, O2 জলে (H2O) রূপান্তরিত হয় অ্যান্টিঅক্সিডেন্ট এনজাইমের মাধ্যমে যেমন glutathione peroxidase(GPX) এবং catalase (CAT)(2H, O,→2H, O প্লাস O)। এই প্রতিক্রিয়াগুলি সাবধানে নিয়ন্ত্রিত হয় এবং সেল সিগন্যালিং সিস্টেমের একটি অংশ হিসাবে বিবেচিত হয় [77, 78]। তবুও, H, O2 রেডক্স-সক্রিয় জৈব ধাতু যেমন মুক্ত লোহার উপস্থিতিতে ধ্বংসাত্মক ফেন্টন বিক্রিয়ায় প্রবেশ করে। ফেন্টন প্রতিক্রিয়ার সময়, ইলেক্ট্রন দাতা হিসাবে Fe2 প্লাস প্রদান করে
H,O-এর জন্য ইলেকট্রন, এর মাধ্যমে Fe3, হাইড্রক্সাইড(HO-), এবং অত্যন্ত ক্ষতিকর হাইড্রক্সিল র্যাডিক্যাল (OH') উৎপন্ন হয় (HO, প্লাস Fe2 প্লাস →Fe3 প্লাস OH- প্লাস OH')। O.-এর মাধ্যমে হ্রাস-অন্যদিকে, Fe3 প্লাস r সালফার প্রোটিন, ফেনটন প্রতিক্রিয়ার জন্য Fe2 প্লাস পুনর্নবীকরণ করে (Fe3 প্লাস প্লাস O.- → Fe2 প্লাস প্লাস O,)[77,78]। তদনুসারে, বিক্রিয়াটি হ্যাবার-ওয়েইস বিক্রিয়াকে নির্দেশ করে যার জন্য লোহার আয়ন প্রয়োজন (O·- প্লাস H, O,→OH" প্লাস O2 প্লাস OH-) , লিপিড, প্রোটিন এবং সেলুলার কম্পার্টমেন্ট যেমন মাইটোকন্ড্রিয়া [২৪]। Fenton প্রতিক্রিয়ার ফলে ROS ডিএনএ বেসগুলির অক্সিডেশনের দিকে পরিচালিত করতে পারে। এই ক্ষতগুলি DNA মেরামতের একটি প্রধান পদ্ধতির মাধ্যমে মেরামত করা হয় যার নাম বেস এক্সিশন রিপেয়ার (BER)। কিন্তু আয়রন ওভারলোড অবস্থায়, লোহা সরাসরি দুটি BER এনজাইমের সাথে আবদ্ধ হয় যার মধ্যে রয়েছে Nei যেমন DNA glycosylase (NEIL1) এবং NEIL2 যার ফলে তাদের এনজাইম্যাটিক ক্রিয়াকলাপকে বাধা দেয় [79]। অক্সিডেটিভ স্ট্রেসের পাশাপাশি লোহার উপস্থিতিতে লিপিড পারক্সিডেশন ঘটে। লিপিড পারক্সিডেশনের সময় , ROS সরাসরি ঝিল্লি PUFA-এর সাথে বিক্রিয়া করে বিষাক্ত অ্যালডিহাইড যেমন 4-হাইড্রক্সিনোনেনাল (4-HNE) এবং ম্যালোন্ডিয়ালডিহাইড (MDA) তৈরি করে। আয়রন হল এই প্রক্রিয়ার জন্য একটি ত্বরণক। অধিকন্তু, ঝিল্লি প্রোটিন আক্রমণ করে ROS এর দিকে পরিচালিত করে। পরিবর্তন আর্কিটেকচারে, ব্যাপ্তিযোগ্যতা, অনমনীয়তা এবং ঝিল্লির অখণ্ডতা [৭৬]। লিপিড পারঅক্সিডেশন পণ্য কার্বনাইলেশনের মাধ্যমে মিসফোল্ড প্রোটিন তৈরি করতে পারে। ইউবিকুইটিন-প্রোটিজোম সিস্টেম মিসফোল্ড প্রোটিনগুলিকে হ্রাস করতে পারে না যার ফলে প্রোটিন একত্রীকরণ এবং নিউরোডিজেনারেশন ঘটতে পারে [14]। উচ্চ স্তরের PUFAs [80] এর কারণে মাইটোকন্ড্রিয়াল ঝিল্লি ক্ষতির ঝুঁকিতে রয়েছে। অতিরিক্ত আয়রন-প্ররোচিত ROS মাইটোকন্ড্রিয়াল মেমব্রেনের ব্যাপ্তিযোগ্যতা বাড়ায়, যা এই অর্গানেল থেকে আয়রন মুক্ত করে। অধিকন্তু, অতিরিক্ত আয়রন আয়রন এবং ক্যালসিয়ামের সহযোগিতাকে প্রভাবিত করে যার ফলে জ্ঞানীয় ফাংশন যেমন সিনাপটিক প্লাস্টিকতা, মাইটোকন্ড্রিয়াল ফাংশন এবং অ্যাক্সন বৃদ্ধির সাথে সম্পর্কিত ডাউনস্ট্রিম সিগন্যালিং পথগুলি ধ্বংস হতে পারে।

অতিরিক্ত আয়রন শুধুমাত্র মাইটোকন্ড্রিয়াল কর্মহীনতার দিকে পরিচালিত করে না কিন্তু এই অর্গানেল থেকে সাইটোসলের দিকে ক্যালসিয়াম এবং সাইটোক্রোম সি নিঃসরণ করে এবং অবশেষে কোষের মৃত্যুর কারণ হয় [14,81]। ডোপামিন-প্ররোচিত নিউরোটক্সিসিটি আয়রন-নির্ভর নিউরোডিজেনারেশনের আরেকটি প্রক্রিয়া হিসাবেও রিপোর্ট করা হয়েছে। এই বিষয়ে, ডোপামিনের অত্যধিক অক্সিডেশনের ফলে বিপাকীয় পদার্থ (যেমন, প্রতিক্রিয়াশীল কুইনোনস) নিউরোনাল মৃত্যুর কারণ হয়। এই প্রক্রিয়াটি অতিরিক্ত আয়রন এবং অক্সিডেটিভ স্ট্রেস দ্বারা ত্বরান্বিত হয় [82]। শারীরবৃত্তীয় অবস্থার মধ্যে, নিউরন বিভিন্ন প্রক্রিয়া দ্বারা অক্সিডেশন পণ্য অপসারণ করে। উদাহরণস্বরূপ, গ্লুটাথিয়ন (জিএসএইচ) একটি শক্তিশালী অ্যান্টিঅক্সিডেন্ট যা অক্সিডেশন পণ্যগুলির সাথে আবদ্ধ করে এবং নিউরনগুলি [76, 82] থেকে অপসারণ করে অন্তঃকোষীয় অক্সিডেন্টের স্তরের ভারসাম্য বজায় রাখে। যাইহোক, প্যাথলজিকাল অবস্থায়, আয়রন ওভারলোড GSH-এর মাত্রা কমিয়ে দেয় যা TfR অত্যধিক এক্সপ্রেশন এবং অক্সিডেটিভ স্ট্রেসের পুনঃপ্রবর্তনের দিকে পরিচালিত করে। TfR-এর একটি উচ্চ স্তর কোষে আরও আয়রন প্রবাহের দিকে নিয়ে যায় যা আয়রন ওভারলোড এবং অক্সিডেটিভ স্ট্রেসকে বাড়িয়ে তোলে[14]। অতএব, লোহার ওভারলোডের সাথে প্রাথমিক জারণ পণ্য যেমন OH, সেকেন্ডারি জারণ পণ্য যেমন বিষাক্ত অ্যালডিহাইড এবং প্রোটিন একত্রিতকরণ নিউরোনাল কোষের মৃত্যুকে প্ররোচিত করতে পারে [76]। ফেরোপটোসিস হল একটি আয়রন-নির্ভর কোষের মৃত্যু যা ডিজেনারেটিভ এবং নন-ডিজেনারেটিভ রোগের সাথে যুক্ত যেমন আলঝাইমার ডিজিজ (AD), পারকিনসন্স ডিস-ইজ (PD), এবং স্ট্রোক [81]। ফেরোপটোসিস প্রোগ্রামড এবং নন-প্রোগ্রামড সেল ডেথের ধরন থেকে আলাদা। এটি অক্সিডেটিভ স্ট্রেস এবং লিপিড পারক্সিডেশন (চিত্র 3) এর চূড়ান্ত পরিণতি। ফেরোপ্টোসিসের সময় জিএসএইচ স্তর হ্রাস পায় এবং জিপিএক্স কার্যকলাপ Fe2 এর উপস্থিতিতে লিপিড পারক্সিডেশনের দিকে পরিচালিত করে [83]। ফেরোপটোসিস অ্যান্টিঅক্সিডেন্ট দ্বারা প্রতিরোধ করা হয় যা আয়রন চিলেশন এবং অ্যান্টি-লিপিড পারক্সিডেশন কার্যকলাপের সাথে জড়িত [81]। সুস্থ বয়স্কদের মধ্যে সেরিব্রাল কর্টেক্স, হিপ্পোক্যাম্পাস, সেরিবেলাম, অ্যামিগডালা এবং বেসাল গ্যাংলিয়া সহ মস্তিষ্কের বিভিন্ন অঞ্চলে আয়রনের উচ্চ ঘনত্ব লক্ষ্য করা গেছে, যেগুলি সম্ভবত নিউরোডিজেনারেটিভ রোগের সাথে জড়িত। নিউরোডিজেনারেশন রোগীদের মস্তিষ্কে আয়রনের ঘনত্ব স্বাস্থ্যকর বার্ধক্যের তুলনায় উল্লেখযোগ্যভাবে বেশি। এছাড়াও, নিউরোগ্লিয়া এবং নিউরনে আয়রন ওভারলোড নিউরোইনফ্লেমেশনকে বাড়িয়ে তোলে এবং নিউরোনাল অ্যাপোপটোসিসের দিকে পরিচালিত করে [24]। আয়রন জমা হওয়া, মস্তিষ্কের স্বাভাবিক বার্ধক্য, এবং স্নায়বিক রোগ যেমন AD[84], PD[85], এবং স্ট্রোক [86](চিত্র 4) এর মধ্যে একটি অর্থপূর্ণ সম্পর্ক রয়েছে।
এই নিবন্ধটি বারদেস্তানি এট আল থেকে নেওয়া হয়েছে। জে ন্যানোবায়োটেকনোল (2021) 19:327 https://doi.org/10.1186/s12951-021-01059-0


