
নিউরোপ্রোটেকশনের এন্ডোজেনাস মেকানিজম
Feb 28, 2022
যোগাযোগ:jerry.he@wecistanche.com
Cistanche নিউরোপ্রোটেকশনে সাহায্য করতে পারে
সারা মারমোলেজো-মার্টিনেজ-আর্টেসেরো 1, ক্যাটি ক্যাসাস 1,† এবং ডেভিড রোমিও-গিটার্ট 1,2,*
1 সেল বায়োলজি, ফিজিওলজি এবং ইমিউনোলজি বিভাগ, ইনস্টিটিউট ডি নিউরোসায়েন্স (আইএনসি),
Universitat Autonoma de Barcelona (UAB), Bellaterra, 08193 বার্সেলোনা, স্পেন; Sara.Marmolejo@uab.cat
2 ল্যাবরেটরি "ব্রেন ডেভেলপমেন্ট অ্যান্ড ফাংশনের হরমোনাল রেগুলেশন"—টিম 8, ইনস্টিটিউট নেকার এনফ্যান্টস-ম্যালাডেস (INEM), INSERM U1151, Université Paris Descartes, Sorbonne Paris Cité,
75015 প্যারিস, ফ্রান্স
* চিঠিপত্র: david.romeo-guitart@inserm.fr; টেলিফোন: প্লাস 33-01-40-61-53-57 † 29 জুন 2020 মারা গেছে।
বিমূর্ত: পোস্টমিটোটিক কোষ, নিউরনের মতো, আজীবন বেঁচে থাকতে হবে। এই কারণে, জীব/কোষগুলি স্ব-মেরামত প্রক্রিয়ার সাথে বিকশিত হয়েছে যা তাদের দীর্ঘ জীবন পেতে দেয়। গত বছরগুলিতে নিউরোপ্রোটেক্টরগুলির আবিষ্কারের কার্যপ্রবাহ প্যাথোফিজিওলজিকাল প্রক্রিয়াগুলিকে ব্লক করার উপর দৃষ্টি নিবদ্ধ করেছে যা নিউরোডিজেনারেশনে নিউরোনাল ক্ষতির দিকে পরিচালিত করে। দুর্ভাগ্যবশত, এই অধ্যয়ন থেকে শুধুমাত্র কয়েকটি কৌশল স্নায়ুবিকাশকে ধীর করতে বা প্রতিরোধ করতে সক্ষম হয়েছিল। এমন বাধ্যতামূলক প্রমাণ রয়েছে যা প্রমাণ করে যে স্ব-নিরাময় প্রক্রিয়াগুলিকে সমর্থন করা যা জীব/কোষের অন্তঃসত্ত্বাভাবে থাকে, সাধারণত সেলুলার স্থিতিস্থাপকতা হিসাবে উল্লেখ করা হয়, নিউরনগুলিকে সশস্ত্র করতে পারে এবং তাদের স্ব-নিরাময় প্রচার করতে পারে। যদিও এই প্রক্রিয়াগুলিকে উন্নত করার জন্য এখনও যথেষ্ট মনোযোগ দেওয়া হয়নি, এই পথগুলি নিউরোনাল মৃত্যু রোধ করতে এবং নিউরোডিজেনারেশন কমানোর জন্য নতুন থেরাপিউটিক উপায়গুলি উন্মুক্ত করে। এখানে, আমরা সুরক্ষার প্রধান অন্তঃসত্ত্বা প্রক্রিয়াগুলি হাইলাইট করি এবং নিউরোডিজেনারেশনের সময় নিউরন বেঁচে থাকার প্রচারে তাদের ভূমিকা বর্ণনা করি।
কীওয়ার্ড: অটোফ্যাজি; সেলুলার স্থিতিস্থাপকতা; অন্তঃসত্ত্বা প্রক্রিয়া; neuroprotection; নিউরোনাল বেঁচে থাকা; উদ্ভাসিত প্রোটিন প্রতিক্রিয়া
1. নিউরোডিজেনারেটিভ প্রসেস
উন্নত দেশগুলিতে আয়ু বৃদ্ধির সাথে সাথে, নিউরোডিজেনারেটিভ রোগের ফ্রিকোয়েন্সি যেমন আলঝাইমার ডিজিজ (AD), পারকিনসন্স ডিজিজ (PD) বা হান্টিংটন ডিজিজ (HD), বা বয়স-সম্পর্কিত আমাদের স্নায়ুতন্ত্রের কর্মক্ষমতা হ্রাস, বাড়তে পারে। যদিও এই প্যাথলজিগুলির নিউরোনাল, অ্যাস্ট্রোগ্লিয়াল এবং মাইক্রোগ্লিয়াল উপাদান রয়েছে বলে প্রমাণের বেশ কয়েকটি লাইন রয়েছে, তবে প্রতিদিনের কার্যকারিতা হ্রাস প্রগতিশীল নিউরোনাল ক্ষতির কারণে ঘটে। তাদের কম টার্নওভারের কারণে, নিউরন হল পোস্টমিটোটিক কোষ যা আজীবন বেঁচে থাকতে হবে। এই কারণে, তাদের বাহ্যিক এবং অভ্যন্তরীণ অপমানগুলি মোকাবেলা করার জন্য একটি শক্তিশালী অভ্যন্তরীণ প্রতিরক্ষামূলক যন্ত্রপাতি প্রয়োজন, যা তাদের মৃত্যুর কারণ হবে। এই বাহ্যিক/অভ্যন্তরীণ বিপদগুলি হল আঘাতমূলক আঘাত বা এক্সিটোটক্সিক যৌগ, প্রতিক্রিয়াশীল অক্সিজেন প্রজাতি (ROS), প্রোটিন সমষ্টি এবং অন্যান্য বিষাক্ত অণু। সৌভাগ্যবশত, কোষের অভ্যন্তরীণ যন্ত্রপাতি রয়েছে যা স্থিতিস্থাপকতা প্রক্রিয়া সক্রিয় করে বা পুনর্জন্মের পথ প্রচার করে মৃত্যুকে অবরুদ্ধ করে। যদিও তরুণ নিউরনগুলির এই স্ব-নিরাময় প্রতিরক্ষামূলক প্রক্রিয়াগুলির যথাযথ কার্যকারিতা রয়েছে, বার্ধক্য তাদের বিরক্ত করে, নিউরনগুলিকে অরক্ষিত রাখে। একই দিকে, নিউরোডিজেনারেটিভ রোগেও এই স্ব-নিরাময় প্রক্রিয়াগুলির কর্মহীনতা বর্ণনা করা হয়েছে।
গত কয়েক দশক ধরে, অভিনব এবং কার্যকর নিউরোপ্রোটেক্টিভ থেরাপি পাওয়ার জন্য প্রচুর প্রচেষ্টা বিনিয়োগ করা হয়েছে। যাইহোক, তারা প্যাথোফিজিওলজিকাল মেকানিজমকে লক্ষ্য করার উদ্দেশ্যে তৈরি করা হয়েছে, যা শেষ পর্যন্ত নিউরোনাল মৃত্যুর ত্বরণে পরিণত হয়। অতএব, কার্যকর নিউরোপ্রোটেক্টিভ পন্থা পাওয়ার জন্য স্বাভাবিকভাবেই নিউরনের যে প্রক্রিয়াগুলো আছে সেগুলোকে বাস্ট করবেন না কেন?
এই প্রতিরক্ষামূলক নেটওয়ার্কটি বিভিন্ন সেলুলার প্রক্রিয়ার ক্রসস্টাল দ্বারা চালিত হয় (যেমন, উন্মোচিত প্রোটিন প্রতিক্রিয়া (UPR), অটোফ্যাজি, ইত্যাদি), কিন্তু তারা একই প্রক্রিয়ায় একত্রিত হয়: কোষকে চাপের সাথে খাপ খাইয়ে নিতে এবং বেঁচে থাকতে দেয় [1-3] . সম্প্রতি, আমরা নিউরোপ্রোটেক্টেন্টগুলি আবিষ্কার করার জন্য একটি অভিনব যুক্তি বিবেচনা করেছি: বিপরীত ফেনোটাইপ, বেঁচে থাকা বা মৃত্যুর সাথে দুটি ভিন্ন স্নায়ুর আঘাতের পরে নিউরনগুলি কী আণবিক প্রক্রিয়া নিযুক্ত করে তা ব্যাখ্যা করুন, যা স্বাস্থ্য এবং নিউরোডিজেনারেশন/বার্ধক্যের সাথে মিল রয়েছে। এটি করার জন্য, আমরা ভিভো-ভিত্তিক পেরিফেরাল নার্ভ ইনজুরি মডেলগুলিতে দুটি ব্যবহার করেছি যা সুরক্ষার অন্তঃসত্ত্বা প্রক্রিয়াগুলির কার্যকারিতা বা কর্মহীনতার অনুকরণ করে। তারা হয় motoneuron (MN) মৃত্যু (রুট অ্যাভালশন (RA)) বা বেঁচে থাকা (ডিস্টাল অ্যাক্সোটমি (DA)), সোমা-আঘাতের দূরত্বের উপর নির্ভর করে [২]। এই মডেলগুলির সাহায্যে এবং একটি সিস্টেম বায়োলজি-ভিত্তিক পদ্ধতির ব্যবহার করে, আমরা নিশ্চিত করেছি যে RA-এর পরে MN-এর মৃত্যু নিউরোডিজেনারেটিভ রোগগুলিতে পরিলক্ষিত নিউরোনাল ক্ষতির সাথে মিল রয়েছে এবং আমরা এটিও বর্ণনা করেছি যে MNs দ্বারা স্নায়ু আঘাতের পরে বেঁচে থাকার জন্য কোন প্রক্রিয়া ব্যবহার করা হয়। [২]। ডিজেনারেটিভ প্রক্রিয়াগুলি হল অ্যাপোপটোসিস, নেক্রোসিস, অ্যানোকিস, এন্ডোপ্লাজমিক রেটিকুলাম (ইআর) স্ট্রেস, নিউক্লিওলার স্ট্রেস, সাইটোস্কেলিটাল পুনর্বিন্যাস এবং মাইটোকন্ড্রিয়াল ডিসফাংশন, যখন বেঁচে থাকার চালকগুলি হল: একটি সঠিক ইউপিআর, তাপ-শক প্রতিক্রিয়া, অটোফেজিক কুইটিন-পথ-পথ। প্রোটিসোম সিস্টেম, চ্যাপেরোন সিস্টেম, ইআর-সম্পর্কিত অবক্ষয় যন্ত্রপাতি এবং অ্যান্টিঅক্সিডেন্ট প্রতিরক্ষা (সারণী 1)। মজার বিষয় হল, এই সমস্ত প্রক্রিয়াগুলিকে কয়েক বছর আগে আলাদাভাবে বর্ণনা করা হয়েছে এবং প্রি-কন্ডিশনিং ইনজুরি হিসাবে উল্লেখ করা হয়েছে (নীচে দেখুন)।
সারণী 1. প্রতিটি অন্তঃসত্ত্বা প্রক্রিয়ার জন্য জড়িত প্রোটিনের সারাংশনিউরোপ্রটেকশন, আণবিক প্রক্রিয়া সহ যার দ্বারা তাদের প্রভাবগুলি মধ্যস্থতা করা হয়।


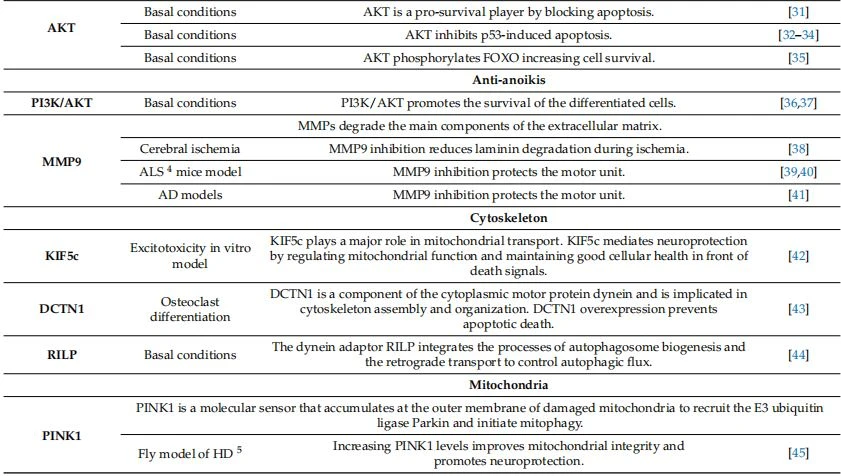
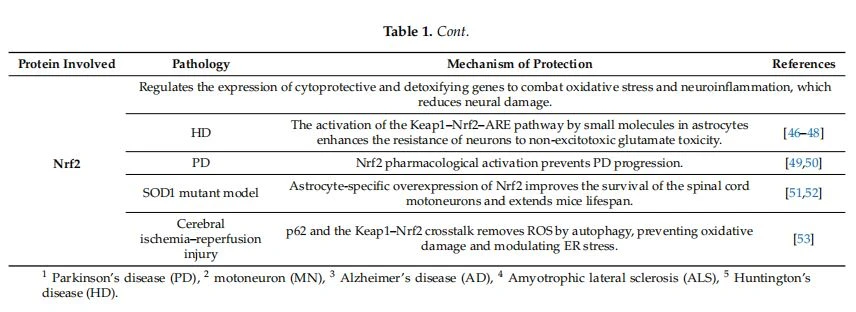
আমরা প্রমাণ করেছি যে ফার্মাকোলজিকাল চিকিত্সার মাধ্যমে নিউরোপ্রোটেকশনের এই অন্তঃসত্ত্বা প্রক্রিয়াগুলিকে বাড়িয়ে তোলা এমএনকে বিভিন্ন প্রজাতি থেকে শুরু করে বিকাশের বিভিন্ন পর্যায়ে [23,54,55] বিভিন্ন-মৃত্যু-সমর্থক পরিস্থিতিতে বেঁচে থাকতে দেয়।
2. এন্ডোজেনাস মেকানিজমের প্রথম প্রমাণ: প্রি-কন্ডিশনিং
সুরক্ষার অন্তঃসত্ত্বা প্রক্রিয়াগুলির ফেনোটাইপিক প্রভাবগুলি 40 বছর আগে বর্ণিত হয়েছিল। 1986 সালে। মুরি এট আল। বর্ণনা করেছেন যে উপলেথাল শারীরবৃত্তীয় চাপ, যা পূর্ব-শর্ত আঘাত হিসাবেও পরিচিত, হৃদয়ে টিস্যু পুনরুদ্ধার বাড়ায় [56]। এখান থেকে, এই নিরাময় প্রক্রিয়াগুলি মস্তিষ্ক এবং মেরুদণ্ডের কর্ডেও (SC) [57] পরিলক্ষিত হয়েছিল। উদাহরণস্বরূপ, এই সেলুলার প্রতিক্রিয়াগুলি স্নায়ুর আঘাতের পরে বা হৃদপিণ্ডের পুনর্জন্মের সময় পরিলক্ষিত হয়, যেখানে যথাক্রমে ROS বা বহিরাগত ভেসিকলের উত্পাদন কার্যকরী পুনরুদ্ধার করে [58-60]। আশ্চর্যজনকভাবে, একটি নির্দিষ্ট অঙ্গের প্রাক-কন্ডিশনিং অন্যদের আঘাত থেকে সুরক্ষা প্রদান করে [61]। বেশ কিছু নির্দিষ্ট প্রভাবক এই প্রভাবগুলির জন্য দায়ী। পূর্বশর্ত আঘাতের পরে, বিভিন্ন মধ্যস্থতাকারীর (নাইট্রিক অক্সাইড বা ROS) উৎপাদন ফসফ্যাটিডাইলিনোসিটল 3-কিনেস (PI3K)/প্রোটিন কিনেস বি (AKT), প্রোটিন কিনেস সি (PKC) এবং অন্যান্য সংকেত পথগুলিকে সক্রিয় করবে। হাইপোক্সিয়া-ইনডিউসিবল ফ্যাক্টর 1-আলফা (Hif1- ) বা NF-kB এর মতো ট্রান্সক্রিপশন ফ্যাক্টরগুলিকে মডিউল করবে। এর ফলে নাইট্রিক অক্সাইড সিন্থেসেস (iNOS), হিট-শক প্রোটিন (HSPs), এবং সাইক্লোক্সিজেনেস-2 (COX-2), যেগুলিকে "শেষ প্রভাবক" হিসাবে বর্ণনা করা হয়েছে, উত্পাদিত হবে এবং প্রচার করবে ভবিষ্যতের অপমানের বিরুদ্ধে টিস্যুর মধ্যে প্রতিরক্ষামূলক প্রভাব [61]। একসাথে, এই অধ্যয়নগুলি পরামর্শ দেয় যে জীব/কোষের অন্তঃসত্ত্বা প্রতিরক্ষামূলক প্রক্রিয়া রয়েছে এবং তাদের বৃদ্ধি করা একটি কার্যকর থেরাপিউটিক কৌশল হতে পারে।
3. নিউরোপ্রোটেকশনের এন্ডোজেনাস মেকানিজম
3.1। ফাইন-টিউনিং অটোফ্যাজি
হোমিওস্ট্যাসিস বজায় রাখার জন্য নিউরনের অন্তঃকোষীয় পদার্থের ক্রমাগত পুনর্ব্যবহার করা প্রয়োজন। ম্যাক্রো-অটোফ্যাজি, পরবর্তীতে অটোফ্যাজি হিসাবে উল্লেখ করা হয়, ইউক্যারিওটিক কোষে একটি অত্যন্ত সমন্বিত আণবিক নেটওয়ার্ক যা লাইসোসোমাল অবক্ষয়ের মাধ্যমে সাইটোপ্লাজমিক সামগ্রীর পুনর্ব্যবহার করে। যদিও এই অবক্ষয় প্রক্রিয়াটি প্রাথমিকভাবে শুধুমাত্র অনাহারে পরিলক্ষিত হয়েছিল, সাম্প্রতিক গবেষণায় দেখা গেছে যে প্রোটিন হোমিওস্ট্যাসিস নিয়ন্ত্রণের জন্য কোষগুলিতে অটোফ্যাজির একটি বেসাল স্তর রয়েছে। এই বেসাল স্তরগুলি অ্যাক্সোনাল রক্ষণাবেক্ষণ এবং স্বাভাবিক অবস্থায় নিউরনগুলির বেঁচে থাকার জন্য অপরিহার্য [62,63]। একটি কার্যকরী অটোফ্যাজিক ফ্লাক্স হল একটি প্রক্রিয়া যা বিভিন্ন অটোফ্যাজি-সম্পর্কিত (ATG) জিন, কাইনেস এবং অন্যান্য নিয়ন্ত্রক প্রোটিন দ্বারা অত্যন্ত সমন্বিত। সাইটোসোলিক লোড [64] হ্রাস করার জন্য লাইসোসোমের সাথে অটোফ্যাগোসোমের সঠিক সূচনা, নিউক্লিয়েশন, প্রসারণ, বন্ধ এবং ফিউশনের জন্য তারা সবাই একসাথে কাজ করে। বার্ধক্যের সময় হিপ্পোক্যাম্পাসে অটোফ্যাজির একটি হ্রাস প্রবাহ পরিলক্ষিত হয়, যখন এর স্তরের পুনঃপ্রতিষ্ঠা নতুন স্মৃতি গঠনে সহায়তা করে [65]। নিউরনে প্রতিবন্ধী বা অকার্যকর অটোফ্যাজি নিউরোডিজেনারেশনের সাথে যুক্ত, যখন অটোফ্যাজির সক্রিয়তা উৎপন্ন করেনিউরোপ্রটেকশন[৫,৫৪]। অ্যামিওট্রফিক ল্যাটারাল স্ক্লেরোসিস (ALS) [66,67] এবং র্যাপামাইসিনের মতো অটোফ্যাজির সূচনাকারীতে প্রাথমিক এবং প্রসারিত হওয়ার পর্যায়গুলির সাথে সম্পর্কিত প্রোটিনের পরিবর্তন লক্ষ্য করা গেছে।নিউরোপ্রটেকশনসেরিব্রাল ইসকেমিয়া, ট্রমাটিক ব্রেন ইনজুরি (টিবিআই) এবং এডি [68-70] এর পরে। ATG5 বা ATG7-এর নিউরন-স্পেসিফিক নকআউট (KO) নিউরোডিজেনারেশন, সাইটোপ্লাজমিক ইনক্লুশন বডির সঞ্চয়, এবং নিউরনগুলির মৃত্যু ঘটায় [62,71], যখন তাদের অত্যধিক এক্সপ্রেশন PD [4] এর একটি মডেলে উপকারী। অবশেষে, p62, যা অটোফাগোসোমে চার্জ পরিচালনা করে এবং অটোফ্যাগোসোম গঠনের শেষ পর্যায়ে মূল ভূমিকা পালন করে, প্রোটিন সমষ্টি দ্বারা চিহ্নিত ফ্লাই মডেলগুলিতে নিউরোপ্রোটেক্টিভ, যা নিউরোডিজেনারেটিভ রোগের একটি বৈশিষ্ট্য [6]।
বেশ কিছু গবেষণায় নিউরোডিজেনারেশনের সময় অটোফ্যাগোসোম এবং অটোলাইসোসোম জমা হওয়া দেখানো হয়েছে, যা পরামর্শ দেয় যে অটোফ্যাজি অতিরিক্ত সক্রিয় হয় এবং নিউরোনাল মৃত্যুর ট্রিগার করতে পারে। সাইটোপ্লাজমের মধ্যে অটোফ্যাজিক প্রক্রিয়াগুলির অস্বাভাবিক জমে ওভারঅ্যাক্টিভেটেড অটোফ্যাজির পরিবর্তে লাইসোসোমাল কর্মহীনতার কারণে হতে পারে [72]। টিবিআইয়ের পরে অটোফ্যাজি সঠিকভাবে শুরু হয়, তবে লাইসোসোমাল কর্মহীনতার কারণে অটোফ্যাগোসোমগুলি বাদ দেওয়া হয় না, যা অমীমাংসিত অটোফ্যাগির দিকে পরিচালিত করে যা নিউরোনাল মৃত্যুর প্রচার করে [73]। এই অ-কার্যকরী লাইসোসোমাল পথগুলি একটি মেরুদণ্ডের আঘাতের (এসসিআই) পরেও দেখা যায়, কার্যকরী পুনরুদ্ধারকে বাধা দেয় [74]। অটোফাগোসোমের ক্লিয়ারেন্সে অনুরূপ বাধা নিউরোডিজেনারেটিভ রোগে (অর্থাৎ, এডি-র মানব মস্তিষ্ক) [75] বর্ণনা করা হয়েছে। এই সমস্ত প্রমাণের একীকরণ পরামর্শ দেয় যে অটোফ্যাজির রেজোলিউশন বাড়ানো সুরক্ষা প্রদান করতে পারে। প্ল্যাট সম্প্রতি নিউরোডিজেনারেশন প্রতিরোধে লাইসোসোমাল প্রোটিনগুলির কার্যকারিতা উন্নত করার থেরাপিউটিক এভিনিউ হাইলাইট করেছেন [76]। ট্রান্সক্রিপশন ফ্যাক্টর ইবি (টিএফইবি) এর অত্যধিক এক্সপ্রেশন, যা লাইসোসোম বায়োজেনেসিস এবং ফাংশনের জন্য প্রয়োজনীয় একটি ট্রান্সক্রিপশনাল নেটওয়ার্ক মডিউল করে, পিডি [7] এর একটি ইঁদুর মডেল এবং একটি এডি ইঁদুর মডেল [8]-এ নিউরোপ্রোটেক্টিভ প্রভাবকে উন্নীত করেছে।
অটোফ্যাজির আনয়ন আমাদের পছন্দ মতো ভাল নয়। যদিও এটি একটি ক্যানোনিকাল প্রতিরক্ষামূলক প্রক্রিয়া, এর যন্ত্রপাতি বা অত্যধিক সক্রিয়করণ কোষের মৃত্যুকে সহজতর করতে পারে [77,78]। মানুষের প্রিয়নগুলির সংস্পর্শে আসার পরে অটোফ্যাজির বাধা নিউরোনাল ক্ষতি হ্রাস করে, ইঙ্গিত করে যে অটোফ্যাজি প্রবর্তন মৃত্যুকেও চালিত করে [79], এবং কম অটোফ্যাজি সূচনা SC হেমিসেকশনের পরে কার্যকরী পুনরুদ্ধারকে উৎসাহিত করে, অ্যাপোপটোসিস প্রতিরোধ করে এবং নবজাতকের ইস্কিমিয়ার পরে পিরামিডাল মৃত্যু হ্রাস করে। এবং প্রাপ্তবয়স্ক ইঁদুর [80-82]। যদি আমরা অ্যাক্সোটোমাইজড নিউরনগুলিতে ফোকাস করি, অটোফাজি ব্লক করা রুব্রোস্পাইনালগুলির জন্য নিউরোপ্রোটেক্টিভ [৮০], যেখানে ATG5 এর মাত্রা বৃদ্ধি মেরুদণ্ডের MNs [5] রক্ষা করে। বিতর্ক যোগ করে, কেমোথেরাপির মাধ্যমে চিকিত্সা করা ক্যান্সার কোষগুলি চিকিত্সা-প্ররোচিত অ্যাপোপটোটিক মৃত্যুকে কাটিয়ে উঠতে অটোফ্যাজি সক্রিয় করে, যখন এমএন-নির্ভর অটোফ্যাজি অ্যাপোপটোসিসকে বাধা দেয় [54]। এছাড়াও, ATGs এছাড়াও নিউরোনাল মৃত্যুর ট্রিগার. ATG5 তার প্রো-অটোফ্যাজিক ক্ষমতা হারায় যখন ক্লিভ হয়, কোষের মৃত্যু [83-85] এর ক্রিয়াকলাপের দিকে নিয়ে যায়। বেক্লিন 1-এর স্বাভাবিক অবস্থায় অ্যান্টি-অ্যাপোপ্টোটিক প্রভাব রয়েছে, তবে সি-টার্মিনাসে এর ক্লিভেজ কোষগুলিকে অ্যাপোপটোটিক সংকেতগুলিতে সংবেদনশীল করে তোলে [9]। অতএব, উভয় সেলুলার প্রক্রিয়ার মধ্যে একটি ক্রসস্ট্যাক রয়েছে এবং কোষগুলি তাদের অপমানের সাথে মোকাবিলা করার জন্য তাদের বেঁচে থাকার সম্ভাবনা বাড়াতে পুনর্নির্দেশ করতে পারে [83]।
সুতরাং, কি জন্য গুরুত্বপূর্ণনিউরোপ্রটেকশন? অটোফ্যাজি বুস্ট করা বা ব্লক করা? ফাইন-টিউনিং হল উত্তর [86]। একটি সূক্ষ্ম সুরযুক্ত অটোফ্যাজির সূচনা দ্বারা উপকারী প্রভাবগুলি পাওয়া যায়: (i) অ-কার্যকরী প্রোটিন/অর্গানেলগুলি অপসারণ করা, (ii) কোষকে নতুন পরিস্থিতির সাথে পুনরায় খাপ খাইয়ে নেওয়ার অনুমতি দেওয়া, এবং (iii) প্রদাহ বা অ্যাপোপটোটিক ইনডুসারের মতো ক্ষতিকর প্রভাবগুলি [ 87,88], যা নিউরোনাল মৃত্যুর মধ্যস্থতা করে। যাইহোক, এই অটোফ্যাজিকে অবশ্যই একটি খুব নির্দিষ্ট সময়ের মধ্যে সক্রিয় করতে হবে, অত্যধিক অবক্ষয় এড়াতে হবে যা কোষের মৃত্যুকে উস্কে দেয়।
সবশেষে, অটোফ্যাজির অ-মাননীয়/অবক্ষয়কারী ফাংশনও রয়েছে, যেমন প্রদাহজনক প্রতিক্রিয়ার মড্যুলেশন, নতুন স্মৃতি গঠন [৬৫], সিনাপটিক হোমিওস্ট্যাসিস [৮৯] রক্ষণাবেক্ষণ, এবং কোষের মধ্যে পণ্যসম্ভার পরিবহন [৮৯] 90]। সুতরাং, এটি সম্পূর্ণরূপে ব্লক করা স্নায়ুতন্ত্র এবং/অথবা নিউরনের অপরিবর্তনীয় ক্ষতির দিকে পরিচালিত করবে।
Cistanche নিউরোপ্রোটেকশনে সাহায্য করতে পারে
3.2। আনফোল্ড প্রোটিন প্রতিক্রিয়ার সেক্সি অংশ মোকাবেলা
নিউরনগুলি ভুল ভাঁজ করা প্রোটিন এবং সমষ্টির প্রতি অত্যন্ত সংবেদনশীল। ER সেলুলার প্রোটিওস্ট্যাসিসের জন্য দায়ী, যা প্রোটিনের সংশ্লেষণ, ভাঁজ এবং বাছাই। এর ফিটনেসের যে কোনো পরিবর্তনের ফলে মিসফোল্ড প্রোটিন জমা হবে, ইআর স্ট্রেস প্ররোচিত করবে এবং ইআর-ওভারলোড রেসপন্স (ইআরও), ইআর-সম্পর্কিত অবক্ষয় (ইআরএডি) পাথওয়েস বা ইউপিআর সক্রিয় করবে, যা একটি অত্যন্ত সংরক্ষিত সেলুলার প্রতিক্রিয়া। ER এবং UPR-এর বন্টন এবং অঙ্গসংস্থানের পরিবর্তনগুলি নিউরোডিজেনারেটিভ রোগগুলিতে পরিলক্ষিত হয়েছে [91-93] এবং যখন একটি স্নায়ু আঘাতের পরে নিউরন বিচ্ছিন্ন হয় [16,94]। বাইন্ডিং ইমিউনোগ্লোবুলিন প্রোটিন (BIP), যা GRP78 নামেও পরিচিত, একটি ER-রেসিডেন্ট চ্যাপেরোন যা UPR-এর প্রধান সেন্সর। নিষ্ক্রিয় অবস্থায়, বিআইপি তিনটি মা-র সাথে আবদ্ধ থাকে।
jor UPR ইফেক্টরস: RNA-অ্যাক্টিভেটেড প্রোটিন কিনেস-এর মতো ER kinase (PERK) যা C/EBP হোমোলগাস প্রোটিন (CHOP), ইনোসিটল-প্রয়োজনীয় প্রোটিন-1 আলফা (IRE1), যা এক্স-বক্স বাইন্ডিং প্রোটিনকে বিভক্ত করে 1 (Xbp1) mRNA, এবং সক্রিয় ট্রান্সক্রিপশন ফ্যাক্টর-6 আলফা (ATF6) [95,96]। বিআইপি যখন মিসফোল্ড করা প্রোটিন শনাক্ত করে, তখন এই ট্রান্সডুসারগুলি সক্রিয় হয় এবং নির্দিষ্ট প্রোটিনের (যেমন, চ্যাপেরোনস, ট্রান্সক্রিপশন ফ্যাক্টর) জিনের অভিব্যক্তিতে পরিবর্তন আনে, যার উদ্দেশ্য জিনের অভিব্যক্তি সংশোধন করে প্রোটিনগুলিকে সঠিকভাবে ভাঁজ করার কোষের ক্ষমতা বাড়ানোর লক্ষ্যে, ভুল ফোল্ডের ক্লিয়ারেন্স বাড়ানোর জন্য। প্রোটিনের ছাড়পত্র, বা প্রোটিন সংশ্লেষণকে বাধা দেয়, কোষকে চাপের সাথে খাপ খাইয়ে নিতে এবং বেঁচে থাকতে দেয় [৯৭]। ধারণার প্রমাণ হিসাবে, ডোপামাইন নিউরনে বিআইপি অত্যধিক এক্সপ্রেশন তাদের বেঁচে থাকা বাড়ায়, যখন এর নিম্ন নিয়ন্ত্রণ নিগ্রাল ডোপামিন নিউরনের মৃত্যুকে প্ররোচিত করে [১০]। এছাড়াও, বিআইপি প্লাস / - ইঁদুরগুলি প্রিয়ন প্যাথোজেনেসিসের ত্বরান্বিত প্রচার দেখায় [98]। সামগ্রিকভাবে, ইউপিআর মড্যুলেশন নিউরোডিজেনারেশনের উপর প্রতিরক্ষামূলক প্রভাব ফেলতে পারে [94], যেমনটি আমাদের গ্রুপ দ্বারা সম্প্রতি পর্যালোচনা করা হয়েছে [99]। ইউপিআর অ্যাক্টিভেশন নিউরোডিজেনারেটিভ রোগের একটি প্রাথমিক ঘটনা, এবং এর সুনির্দিষ্ট মডিউলেশন প্যাথলজি অগ্রগতির উপর উপকারী প্রভাব ফেলেছে [100,101]। যদিও ইউপিআর কোষ সুরক্ষার একটি অন্তঃসত্ত্বা প্রক্রিয়া হিসাবে কাজ করতে পারে, তবে এর (ওভার) সক্রিয়করণ অ্যাপোপটোসিসকে উৎসাহিত করে [102] (অর্থাৎ, PERK অক্ষের প্রো- বা অ্যান্টি-অ্যাপোপ্টোটিক ক্ষমতা রয়েছে [91])। এছাড়াও, সাম্প্রতিক প্রমাণগুলি ইঙ্গিত করে যে ER-এর বিভিন্ন বিশৃঙ্খলাগুলি UPR-এর 3টি শাখাকে আলাদাভাবে সক্রিয় করবে, যা নির্দেশ করে যে তাদের মধ্যে সমন্বিত কো-অ্যাক্টিভেশন সবসময় উপস্থিত থাকে না।
অতএব, একটি নির্দিষ্ট অপমানের প্রতিক্রিয়া জানাতে সেলের একটি নির্দিষ্ট প্রোগ্রাম রয়েছে। উদাহরণস্বরূপ, CHOP ব্লকেজ বা Xbp1 অত্যধিক এক্সপ্রেশন স্নায়ুর আঘাতের পরে নিউরনের বেঁচে থাকা বাড়ায়, ইঙ্গিত করে যে প্রতিটি শাখার নিউরনের মৃত্যুতে আলাদা ভূমিকা রয়েছে [16]।
মস্তিষ্কের আঘাতের পরে PERK এর প্রাথমিক সক্রিয়করণনিউরোপ্রটেকশন, যখন এই পথের মাধ্যমে টেকসই সংকেত কোষের ক্ষতিকে বাড়িয়ে তোলে [১১]। ওভার এক্সপ্রেশন বা ফার্মাকোলজিক্যাল PERK অ্যাক্টিভেশন টাউ প্যাথলজি [12] হ্রাস করে, যখন এটির টেকসই সক্রিয়করণ রোধ করে নিউরোনাল মৃত্যু [13] হ্রাস করে এবং বয়স-সম্পর্কিত স্মৃতিশক্তি হ্রাস [14] উন্নত করে। অ্যাস্ট্রোসাইটে PERK-এর নিষেধাজ্ঞা ভিভো মডেলের একটি প্রিয়ন-রোগে নিউরোনাল ক্ষয়কে বিলম্বিত করে। মজার বিষয় হল, অ্যাস্ট্রোসাইটে PERK অ্যাক্টিভেশন সিক্রেটমকে বিরক্ত করে, এর সিনাপটোজেনিক ফাংশনকে পরিবর্তন করে এবং সিনাপটিক ক্ষতির কারণ হয় [15]। একই লেখক বর্ণনা করেছেন যে প্রধান
PERK-এর এই ক্ষতিকর প্রভাবের সাথে জড়িত ডাউনস্ট্রীম মেকানিজম হল এক্সট্রা সেলুলার ম্যাট্রিক্স-সেল অ্যাডেসন পাথওয়ে, যা ইউপিআরকে অ্যানোকিসের সাথে ক্রসলিংক করে (নীচে দেখুন, বিভাগ 3.4)। ট্রান্সক্রিপশন ফ্যাক্টর 5 (ATF5) স্তরগুলি সক্রিয় করা সরাসরি PERK/ইউক্যারিওটিক ট্রান্সলেশন ইনিশিয়েশন ফ্যাক্টর 2a (eIF2a) এর সক্রিয়করণের উপর নির্ভরশীল। ATF5 সরাসরি সেই নিউরনের সাথে যুক্ত করা হয়েছে যেগুলি মানুষের মৃগীরোগে মৃত্যুর জন্য আরও স্থিতিস্থাপক [26]। যাইহোক, এই প্রভাবগুলির পরবর্তী পরিণতিগুলি ততটা স্পষ্ট নয়। ATF5 দুটি অ্যান্টি-অ্যাপোপ্টোটিক ইফেক্টর (নীচে দেখুন), বি-সেল লিম্ফোমা 2 (Bcl-2) এবং ইনডিউসড মাইলয়েড লিউকেমিয়া সেল ডিফারেনসিয়েশন প্রোটিন (Mcl-1) [103] এর প্রকাশকে প্ররোচিত করে, যা বাধা দেবে apoptosis ATF5 নন-নিউরোনাল টিস্যুতে র্যাপামাইসিন (এমটিওআর) এর যান্ত্রিক লক্ষ্যকেও সংশোধন করে, যা অটোফ্যাজির প্রধান মডুলেটর, ইউপিআর এবং অটোফ্যাজিকে আন্তঃসম্পর্কিত করে।
IRE1 সক্রিয়করণ লিভারের ব্যর্থতা কমিয়ে দেয় [17], এবং এর ডাউনস্ট্রিম ইফেক্টর Xpb1 কার্ডিয়াক সুরক্ষাকে উৎসাহিত করে [18],নিউরোপ্রটেকশনAD তে, PD তে, এবং স্ট্রোকের পরে [19-21]। আশ্চর্যজনকভাবে, ডায়াবেটিক এবং ইসকেমিয়া-প্ররোচিত রেটিনোপ্যাথিতে একটি গবেষণায় দেখা গেছে যে UPR-এর প্রতিরক্ষামূলক প্রভাবগুলি Xbp1 [22] দ্বারা মধ্যস্থতা করে। তবুও, IRE1 শাখার দীর্ঘস্থায়ী অ্যাক্টিভেশন টিউমার নেক্রোসিস ফ্যাক্টর-a (TNF-) রিসেপ্টর-সংশ্লিষ্ট ফ্যাক্টর 2 (TRAF2) এর ফসফোরিলেশনের দিকে পরিচালিত করবে, যা বিভিন্ন উপায়ে অ্যাপোপটোটিক কোষের মৃত্যুকে ট্রিগার করবে [104-106]। Ire1 এর একটোপিক অত্যধিক এক্সপ্রেশন একটি পিডি ড্রোসোফিলা মডেলে একটি অটোফ্যাজি-নির্ভর নিউরোনাল মৃত্যুর দিকে পরিচালিত করবে [107]। অতএব, একটি নির্দিষ্ট উইন্ডোর সময় IRE1 -Xbp1-এর একটি সামঞ্জস্যপূর্ণ মড্যুলেশন সুরক্ষা প্রয়োগ করতে পারে [108]।
আমরা সম্প্রতি বর্ণনা করেছি যে নিউরোহেল ফার্মাকোলজিকাল চিকিত্সা বা sirtuin1 (SIRT1) অত্যধিক এক্সপ্রেশন স্নায়ুর আঘাতের পরে MN এর বেঁচে থাকার প্ররোচিত করে এবং IRE1 ফসফোরিলেশন হ্রাস করার সময় ক্লিভড ATF6 এর উপস্থিতি বাড়ায় [23]। ATF6 এর ফার্মাকোলজিক্যাল অ্যাক্টিভেশন প্রোটিওস্ট্যাসিস সক্রিয় করে বিভিন্ন ইস্কেমিয়া মডেলে সুরক্ষা প্ররোচিত করে [২৪], এবং এই ট্রান্সক্রিপশন ফ্যাক্টরের বাধা ক্ষতিকর প্রভাব ফেলে। বিস্তারিতভাবে, ATF6 অ্যান্টিঅক্সিডেন্ট-প্রতিক্রিয়া-সম্পর্কিত প্রোটিনের অভিব্যক্তিকে সংশোধন করে, ROS হরমেসিস [109] সংশোধন করে। ATF6 এর জোরপূর্বক অভিব্যক্তি স্ট্রোকের পরে কার্যকরী ফলাফলের উন্নতি করে এবং লেখকরা পরামর্শ দেন যে এই প্রভাবটি অটোফ্যাজি [25] এর আবেশ দ্বারা মধ্যস্থতা করা যেতে পারে।
সুতরাং, থেরাপিউটিকভাবে আকর্ষণীয়, সক্রিয়করণ বা ইউপিআর কমানো কী? ইউপিআর-এর নির্দিষ্ট শাখাগুলির সক্রিয়করণ হল মূল বিষয়। ইউপিআরের সুনির্দিষ্ট সক্রিয়করণ কোষকে প্রোটিওস্ট্যাসিস পুনরুদ্ধার করতে সাহায্য করে প্রতিরক্ষামূলক প্রভাবকে উন্নীত করতে পারে। তবুও, এই ধারণাটি সতর্কতার সাথে নেওয়া উচিত কারণ যদি চাপ অব্যাহত থাকে এবং প্রোটিওস্ট্যাসিস পুনরুদ্ধার করা না হয় তবে ইউপিআর নিউরোনাল অ্যাপোপটোসিসকে ট্রিগার করে যা PERK বা IRE1 শাখা [110] দ্বারা মধ্যস্থতা করে। উপরন্তু, UPR এছাড়াও অটোফ্যাজি এবং তদ্বিপরীত সাথে সংযুক্ত। BIP অটোফ্যাজিক প্রতিক্রিয়া মধ্যস্থতা করে, নিউরোনাল বেঁচে থাকার প্রচার করে [111]। অবশেষে, ইউপিআর-এর 3টি শাখা ATG-এর প্রতিলিপিকে মডিউল করে [112], উভয় সেলুলার প্রক্রিয়ার মধ্যে একটি জটিল লিঙ্কের পরামর্শ দেয়।
3.3। "আজ নয়" অ্যাপোপটোসিস
অ্যাপোপটোসিস একটি ক্যাসপেস-নির্ভর প্রোগ্রামড সেল ডেথ (পিসিডি) যা কোষের প্লাজমা ঝিল্লি এবং অর্গানেলগুলির অখণ্ডতা বজায় রাখে [113]। এর ডিসরিগুলেশন অনেক ক্যান্সার, নিউরোডিজেনারেটিভ বা প্রদাহজনিত প্যাথলজির কারণ। ক্যাসপেসেস-প্ররোচিত মৃত্যু একটি অত্যন্ত নিয়ন্ত্রিত প্রক্রিয়া যা চূড়ান্ত কোষের মৃত্যু ঘটানোর জন্য বেশ কয়েকটি খেলোয়াড়ের সমন্বিত কার্যকারিতা প্রয়োজন [114]। অ্যাপোপটোসিসের মতো ডেথ হলমার্কগুলি অ্যামিওট্রফিক ল্যাটারাল স্ক্লেরোসিস (ALS) ইঁদুরের মডেল, AD, বা PD-তে পাওয়া যায়, যদিও এটি নিউরোনাল মৃত্যুর চূড়ান্ত নির্বাহক কিনা তা স্পষ্ট নয় [115]। বিবর্তনের সময়, কোষগুলি অপ্রয়োজনীয় অবস্থায় তাদের মৃত্যু রোধ করার জন্য বা একটি অকাল পিসিডি এড়াতে বিভিন্ন প্রক্রিয়া তৈরি করেছে। কোষগুলি কেবল তখনই একটি দক্ষ অ্যাপোপটোটিক মৃত্যুকে ট্রিগার করে যখন প্রো- বা অ্যান্টি-অ্যাপোপ্টোসিস যন্ত্রপাতির মধ্যে ভারসাম্য তাদের মৃত্যুর দিকে ঠেলে দেয়। আমাদের ভিভো মডেলগুলির উপর ভিত্তি করে, আমরা লক্ষ্য করেছি যে RA অ্যাপোপটোটিক পথগুলিকে প্ররোচিত করে তবে অ্যান্টি-অ্যাপোপ্টোটিকগুলিকেও প্ররোচিত করে এবং তাদের ভারসাম্য একটি বিকল্প এবং অজানা মৃত্যুর দিকে নিয়ে যায় যা ক্লাসিক্যাল অ্যাপোপটোসিস নয় [2]। ক্ষেত্রের শেষ প্রকাশনাগুলি পরামর্শ দেয় যে ক্যাসপেসগুলি কোষের মৃত্যুকে [116] প্রচার না করে স্নায়ুতন্ত্রের পুনর্নির্মাণের মাধ্যমেও কাজ করে এবং তাদের কার্যকলাপ তার উপকোষীয় অবস্থানের উপর নির্ভর করে। অতএব, নিউরোডিজেনারেটিভ টিস্যুতে পাওয়া ক্যাসপেসের সক্রিয় ফর্মগুলির একটি অ-মৃত্যু-সম্পর্কিত ভূমিকা থাকতে পারে এবং চূড়ান্ত নিউরনের মৃত্যু অন্যান্য মারাত্মক প্রক্রিয়ার মাধ্যমে হয়।
অ্যাপোপটোসিস অ্যান্টি-অ্যাপোপ্টোটিক পথের দ্বারা বাধাগ্রস্ত হতে পারে, যা তিনটি প্রোটিন পরিবার দ্বারা চালিত হয়: FLICE-ইনহিবিটরি প্রোটিন, Bcl-2, এবং ইনহিবিটরস অফ অ্যাপোপটোসিস প্রোটিন (IAPs)। IAPs প্রয়োগনিউরোপ্রটেকশনএকটি ইসকেমিয়া মডেলে [27] বা নবজাতকের পর্যায়ে স্নায়ুর আঘাতের পরে এমএনগুলির মৃত্যু এড়ান [28]। প্রাপ্তবয়স্ক অবস্থায় অ্যাসোটমির পরে নিউরোনাল মৃত্যুর বাধার জন্য আইএপিগুলিকে দায়ী করার প্রস্তাব করা হয়েছে [২৯]। একই দিকে, এক্স-লিঙ্কড-আইএপি (XIAP) এর একটি পোস্ট-ট্রান্সলেশনাল পরিবর্তন, যা এর অ্যান্টি-ক্যাসপেস 3 ফাংশনকে ব্লক করে, পিডি প্যাথোজেনেসিসের অবদানকারী হিসাবে বর্ণনা করা হয়েছে [117]।
ইস্কেমিক প্রি-কন্ডিশনিং, যা আংশিকভাবে ইসকেমিয়ার ক্ষতিকারক প্রভাব হ্রাস করে, আইএপিগুলির মাধ্যমে কাজ করে এবং ক্যাসপেস ক্যাসকেড অ্যাক্টিভেশনের পরে কোষগুলিকে বেঁচে থাকতে সক্ষম করে [৩০]। আইএপিগুলি নবজাতক অ্যাসোটমি [২৮] এর পরে এমএনগুলিতে গ্লিয়াল সেল-ডিরাইভড নিউরোট্রফিক ফ্যাক্টর (জিডিএনএফ) এর প্রো-সারভাইভাল প্রভাবের মধ্যস্থতা করে। অন্যান্য আণবিক পথ যেগুলি প্রো-অ্যাপোপ্টোটিক প্রোটিনগুলিকে সংশোধন করে কোষের মৃত্যু এড়ায় তা হল এক্সট্রা সেলুলার সিগন্যাল-নিয়ন্ত্রিত কাইনেস (ERK) এবং AKT। এই অর্থে, AKT পথটিকে অ্যাপোপটোসিসকে অবরুদ্ধ করে একটি প্রো-সারভাইভাল প্লেয়ার হিসাবে বর্ণনা করা হয়েছে [31]। AKT এর অবক্ষয় প্রচার করে অ্যাপোপটোসিস ইনডিউসার p53 কে বাধা দেয় এবং তাই এর প্রো-অ্যাপোপ্টোটিক ক্ষমতা [32-34] ব্লক করে। অন্যথায়, ক্যাসপেসগুলি এর বিভাজন দ্বারা AKT-কে বাধা দিতে সক্ষম হয়, যা কোষের বেঁচে থাকা এবং মৃত্যুর একটি সূক্ষ্ম সুরযুক্ত মড্যুলেশন নির্দেশ করে [118]। অন্যদিকে, AKT কার্যকলাপ ফর্কহেড বক্স প্রোটিন O (FOXO) ট্রান্সক্রিপশন ফ্যাক্টরকে ফসফরিলেট করে। এগুলি অ্যাপোপটোসিসের সাথে সম্পর্কিত [119] এবং তাদের পরিবর্তন একটি বর্ধিত কোষের বেঁচে থাকার দিকে পরিণত করে [35]। FOXO-এর AKT-নির্ভর ফসফোরিলেশন নিউক্লিয়াসে এর প্রবেশপথকে এড়িয়ে যায়, Bcl-2- কোষের মৃত্যুর মধ্যস্থতাকারী (BIM) বা Bcl-2 উনিশ-কিলোডাল্টন-ইন্টারেক্টিং-এর মতো প্রো-অ্যাপোপ্টোটিক জিনের আবেশ রোধ করে প্রোটিন 3 (Bnip3) [119-121]। অন্যদিকে, FOXO-এর পোস্ট-ট্রান্সডাকশনাল পরিবর্তনগুলি কোষের মধ্যে তাদের ট্রান্সক্রিপশনাল নেটওয়ার্ককে ফাইন-টিউন করে, এটিকে অ্যাপোপটোসিস [54,121-123] এর পরিবর্তে অটোফ্যাজি ইন্ডাকশনের দিকে নিয়ে যায়। অতএব, FOXO পরিবারের নির্দিষ্ট মড্যুলেশন অ্যাপোপটোসিস [54,124] বাধা দিয়ে নিউরোনাল বেঁচে থাকার প্রচারের জন্য একটি অভিনব উপায়।
অবশেষে, নিউরোনাল কার্যকলাপ এনএমডিএ-নির্ভর অ্যান্টি-অ্যাপোপ্টোটিক জিনের আপগ্র্যুলেশন [125,126] দ্বারা অ্যান্টি-অ্যাপোপ্টোসিসের প্রবর্তক। এই আপ-নিয়ন্ত্রিত জিনগুলির মধ্যে কিছু মাইটোকন্ড্রিয়াকে চাপের প্রতি আরও প্রতিরোধী হতে দেয় [126], কোষকে অপমান থেকে বাঁচতে সাহায্য করে।
3.4। অ্যান্টি-অনোকিস দ্বারা পুনরায় সংযুক্ত করা হচ্ছে
কোষ এবং এক্সট্রা সেলুলার ম্যাট্রিক্স (ECM) এর মধ্যে মিথস্ক্রিয়া টিস্যুর মধ্যে সঠিক কার্যকরী একীকরণের জন্য অপরিহার্য। যখন এই ক্রসস্ট্যাকটি এড়ানো হয়, তখন কোষটি একটি পিসিডি নামক অ্যানোকিসের মাধ্যমে মারা যায়, যা অ্যাপোপটোসিসের সাথে পথ ভাগ করে। মজার বিষয় হল, অভ্যন্তরীণ অ্যানোকিস প্রোগ্রামগুলির ভাঙ্গন টিউমারাল কোষগুলিতে ক্ষতিকারকতা প্রদান করে, তাদের পালাতে এবং মৃত্যু ছাড়াই অন্যান্য টিস্যুতে পুনরায় সংযুক্ত করার জন্য যথেষ্ট সেলুলার স্থিতিস্থাপকতা দেয় [127,128]। এই মিথস্ক্রিয়াগুলির প্রধান প্রভাবকগুলি হল ইন্টিগ্রিন প্রোটিন, যা এবং সাবইউনিটগুলির সংমিশ্রণ দ্বারা গঠিত হয়। এই সংমিশ্রণটি লিগ্যান্ডের নির্দিষ্টতা এবং অন্তঃকোষীয় সংকেত নির্ধারণ করবে। ইসিএম সংকেতগুলি ইন্টিগ্রিনের মাধ্যমে নিউরনে প্রেরণ করা হয়, কোষের আকৃতি, বেঁচে থাকা, গতিশীলতা, বিস্তার, বিকাশ, নিউরোনাল সংযোগ এবং সিনাপটিক প্লাস্টিসিটির জন্য অপরিহার্য। ইন্টিগ্রিনগুলি বৃদ্ধির কারণগুলির অন্তঃকোষীয় সংকেতগুলির জন্যও গুরুত্বপূর্ণ [130], যা প্রো-ডেথ মেকানিজমগুলিকে ব্লক করে নিউরোনাল বেঁচে থাকার সুপরিচিত মডুলেটর। সেল-ইসিএম ইন্টারঅ্যাকশনের জন্য 1 ইন্টিগ্রিন সাবুনিট অপরিহার্য, এবং এর ব্লকেজ অ্যানোকিস [36] এবং নিউরোনাল অ্যাপোপটোসিস [131] ট্রিগার করার জন্য যথেষ্ট। এছাড়াও, এই সাবইউনিটের অন্তঃকোষীয় সংকেত রেটিনাল গ্যাংলিয়ন কোষগুলির বেঁচে থাকার সাথে সম্পর্কিত [১৩২], এবং তাদের ত্রুটিগুলি নিউরোডিজেনারেটিভ ডিসঅর্ডারে উপস্থিত থাকে [১৩৩]।
তা সত্ত্বেও, কোষগুলি মৃত্যুকে প্রতিরোধ করার জন্য অ্যান্টি-অ্যানোকিস সাবরুটিন তৈরি করেছে, যা টাইরোসিন কাইনেস, ছোট GTPases [128], NF-kB [134], PI3K/AKT, প্রোটো-অনকোজিন টাইরোসিন-প্রোটিন কিনেস (Src) বা ERK অক্ষ দ্বারা শুরু হয়। , এবং অটোফ্যাজি দ্বারা [135,136]। এনএফ-কেবি বিসিএল-2 এবং আইএপি- 1 [১৩৫]-এর মতো অ্যান্টি-অ্যাপোপ্টোটিক প্রোটিনগুলিকে ট্রিগার করে অ্যান্টি-অ্যানোকিস মডিউল করে, এদিকে কোষের বেঁচে থাকার ক্ষেত্রে PI3K/AKT-এর ভূমিকা ব্যাপকভাবে নথিভুক্ত এবং বেঁচে থাকার ক্ষেত্রে অবদান রাখে ভিন্ন কোষের [36,37]। ইসিএম বিচ্ছিন্নতা অটোফ্যাজিকেও প্ররোচিত করে, যা একটি স্ব-প্রতিরক্ষামূলক প্রক্রিয়া যা বাইপাস অ্যাপোপটোসিস [135]। প্রমাণের এই টুকরোগুলি আবার স্ব-প্রতিরক্ষামূলক প্রক্রিয়াগুলির মধ্যে একটি জটিল নেটওয়ার্কের পরামর্শ দেয়।
ম্যাট্রিক্স মেটাল-লোপ্রোটিনেজ (এমএমপি) বৃদ্ধির কারণে টিবিআই-এর পরে নিউরোনাল মৃত্যুতেও অ্যানোকিস উপস্থিত রয়েছে যা ইসিএম প্রোটিনগুলি [137] ধ্বংস করে। MMPs এক্সপ্রেশন এবং স্তরগুলি নিউরোট্রমার পরে পরিবর্তিত হয়, এবং অ্যাক্সোনাল ডিজেনারেশন, গ্লিয়াল স্কার গঠন এবং সিনাপটিক রিমডেলিং-এ তাদের বিভিন্ন ভূমিকা রয়েছে। নিউরোনাল বেঁচে থাকার বিষয়ে, এমএমপি 9 এর বাধা ল্যামিনিন অবক্ষয় হ্রাস করে সেরিব্রাল ইস্কেমিয়াতে প্রতিরক্ষামূলক প্রভাব ফেলে [৩৮]। এমএমপিগুলি নিউরোডিজেনারেশনেও জড়িত [138]। সাম্প্রতিক গবেষণায় বর্ণনা করা হয়েছে যে MMP9 এর বাধা একটি ALS ইঁদুর মডেল [39,40] এবং AD মডেল [41] থেকে মোটর ইউনিটে প্রতিরক্ষামূলক প্রভাব ফেলে। অতএব, নির্দিষ্ট MMP গুলিকে বাধা দেওয়ার জন্য চিকিত্সা পরোক্ষভাবে নিউরনের মধ্যে অ্যান্টি-অ্যানোকিস প্রোগ্রাম বজায় রাখবে যা এর বেঁচে থাকার সুবিধা দেয়।
3.5। সাইটোস্কেলটন এবং মোটর পরিবহনকারী
নিউরোনাল সাইটোস্কেলটন তিনটি ভিন্ন স্ট্রাকচারাল কমপ্লেক্সের সমন্বয়ে গঠিত: মাইক্রো-টিউবুলস (MTs), ইন্টারমিডিয়েট ফিলামেন্টস (IF), এবং অ্যাক্টিন মাইক্রোফিলামেন্ট। তাদের বিভিন্ন সেলুলার ফাংশন রয়েছে: MT নিউরাইট এবং ডেনড্রাইট গতিবিদ্যা নিয়ন্ত্রণ করে [139], অ্যাক্টিন কোষের আকারবিদ্যার দায়িত্বে থাকে [140], এবং IF সাইটোস্কেলটন গঠনে যান্ত্রিক এবং স্থিতিশীলতা চালায় [141]। স্ট্রাকচারাল কমপ্লেক্সের ত্রুটিগুলি নিউরোডিজেনারেটিভ রোগে, পেরিফেরাল নিউরোপ্যাথিতে, সিনাপটিক কর্মহীনতায় পরিলক্ষিত হয় এবং পরিপক্ক মেরুদণ্ডের ক্ষতির দিকে পরিচালিত করে [141-146]।
MTs-এর গতিশীলতা একটি অত্যন্ত নিয়ন্ত্রিত প্রক্রিয়া, এবং এর ভারসাম্যহীনতা নিউরন বেঁচে থাকা বা অ্যাক্সন কর্মক্ষমতা [142] এর জন্য বিধ্বংসী পরিণতি বহন করতে পারে, যখন এর স্থিতিশীলতা নিউরোনাল মৃত্যু [147] ব্লক করে এবং কেন্দ্রীয় স্নায়ুতন্ত্রে অ্যাক্সোনাল বৃদ্ধিকে ত্বরান্বিত করে [148]। আরও বিস্তারিতভাবে বলা যায়, সাইটোস্কেলিটাল স্ট্রাকচার হল রেলওয়ে, যখন কাইনসিন এবং ডাইনিন মোটর প্রোটিন হল ট্রেন যা যথাক্রমে এন্টারোগ্রেড বা রেট্রোগ্রেড পরিবহনের মাধ্যমে কার্গো স্থানান্তর করে। অতএব, মোটর কমপ্লেক্সগুলিও নিউরনের বেঁচে থাকার জন্য অপরিহার্য। কাইনসিন পরিবার গঠিত হয় কাইনসিন-1 (ঐতিহাসিকভাবে KIF5c নামে পরিচিত) এবং কাইনসিন-3 (KIF1A, KIF1B, এবং KIF1B) সদস্যদের দ্বারা [149]। KIF5c MN তে সমৃদ্ধ হয় [150], এবং এর জেনেটিক বিলুপ্তি MN রোগ এবং পক্ষাঘাত [149,151] এর সাথে যুক্ত। এটি সম্প্রতি ALS [152] এর প্যাথোজেনেসিসে নিহিত হয়েছে। MTs-এর সাথে এর মিথস্ক্রিয়া দুর্বলতার ফলে অ্যাক্সোনাল অবক্ষয় এবং পরবর্তীতে নিউরোনাল মৃত্যু হয় [153]। KIF5c ব্যাঘাতের ফলে মাইটোকন্ড্রিয়াল ডাইনামিক ডিসঅর্ডার হয়, যার ফলে উদ্দীপনার উপর নির্ভর করে নিউরোনাল বেঁচে থাকা বা মৃত্যু হয়। অধিকন্তু, KIF5c মাইটোকন্ড্রিয়াল ফাংশনকে সূক্ষ্ম সুর করে, সেলুলার স্বাস্থ্যে পরিণত হয় (নীচে দেখুন, বিভাগ 3.6।) [৪২], এবং এর মড্যুলেশন প্রচার করতে পারেনিউরোপ্রটেকশন. প্রোটিন সমষ্টি, যেমন অ্যামাইলয়েড-, KIF5a স্থায়িত্বের উপর ক্ষতিকর প্রভাব ফেলে, যার ফলে মাইটোকন্ড্রিয়াল আন্দোলন এবং ভাল কাজ হয় [154]।
বিপরীতমুখী প্রোটিনগুলিও প্রয়োগ করেনিউরোপ্রটেকশন. এগুলি ডাইনিনের এবং বিভিন্ন প্রোটিন দ্বারা গঠিত মাল্টিপ্রোটিন কমপ্লেক্স, যেখানে p150glue (dynactin1/DCNT1) হল সর্বাধিক প্রচুর সাবইউনিট। একটি অকার্যকর ডাইন্যাক্টিন সাবুনিট 1 (DCTN1) একটি ALS ইঁদুর মডেল হিসাবে ব্যবহৃত হয়েছে এবং এর মিউটেশন একটি ত্রুটিপূর্ণ অ্যাক্সোনাল পরিবহনের কারণ হয় যা ইঁদুরগুলিতে ALS-এর মতো ফেনোটাইপের দিকে নিয়ে যায় [155,156]। KO ইঁদুরগুলি বয়স-নির্ভর MN মৃত্যু দেখায়, যা একটি অটোফ্যাজি ব্লকেজের সাথে থাকে [157]। নিউরোনাল বডির মধ্যে অটোফ্যাজিক ভ্যাকুওল পরিবহনে DCTN1 এর একটি স্পষ্ট ভূমিকা রয়েছে এবং এর ব্যাঘাত দূরবর্তী অ্যাক্সনগুলিতে অ্যাম্ফিসোম জমার কারণ হয়, যা AD-এর মতো ফেনোটাইপ [158] এর দিকে পরিচালিত করে। ডাইনিন অ্যাডাপ্টার র্যাব-ইন্টারেক্টিং লাইসোসোমাল প্রোটিন (আরআইএলপি) অটোফ্যাগোসোম বায়োজেনেসিস, পরিবহনে একটি গুরুত্বপূর্ণ ভূমিকা পালন করে এবং এর বাধা অটোফ্যাজিক প্রক্রিয়াগুলি সঞ্চয় করে [৪৪]। সামগ্রিকভাবে, এটি লক্ষ্য করা গেছে যে MT কর্মহীনতা, কাইনসিন এবং ডাইনিন অ্যাবারেন্ট স্থানীয়করণের সাথে, লাইসোসোমাল কর্মহীনতার দিকে পরিচালিত করে, যা AD [159] তে অটোফাগোসোম জমা এবং প্রিসিন্যাপটিক ডিস্ট্রোফিকে উস্কে দেয়। অস্টিওক্লাস্টে ডিসিটিএন 1 এর অত্যধিক এক্সপ্রেশন অ্যাপোপটোটিক মৃত্যুকে প্রতিরোধ করে, পরামর্শ দেয় যে মোটর প্রোটিনগুলি অন্যান্য কোষের প্রকার এবং টিস্যুতে সেলুলার মৃত্যু এড়াতেও ভূমিকা রাখে [৪৩]।
সংক্ষেপে, অনেক নিউরোডিজেনারেটিভ রোগে এবং স্নায়ুতন্ত্রের আঘাতের পরে অ্যাক্সোনাল পরিবহনে হ্রাস পাওয়া যায়। এই ত্রুটির ফলে এমটি কাঠামো এবং/অথবা অক্ষীয় পরিবহনের জন্য প্রয়োজনীয় আণবিক মোটর পরিবর্তন হবে [5]। নিউরনের স্বাভাবিক ক্রিয়াকলাপের জন্য সঠিক অ্যাক্সোনাল ট্রান্সপোর্ট গুরুত্বপূর্ণ, এবং এই প্রক্রিয়ার প্রতিবন্ধকতাগুলি নিউরোনাল মৃত্যুতে অবদান রাখে। কোষের ট্রান্সপোর্ট যন্ত্রপাতিকে বাড়ানো, হয় সাইটোস্কেলটনকে স্থিতিশীল করে বা মোটর প্রোটিনের মাত্রা/ক্রিয়াকলাপ বাড়ানোর মাধ্যমে, নিউরনের মধ্যে একটি সঠিক অটোফ্যাজি ফ্লাক্স পুনঃপ্রতিষ্ঠিত করে নিউরোপ্রোটেক্টিভ হওয়ার প্রমাণ দিয়েছে [5]।
3.6। মাইটোকন্ড্রিয়াল ওয়েল-ফাংশন
নিউরনের কার্যকারিতা শক্তি এবং ক্যালসিয়াম (Ca2 প্লাস) ভারসাম্যের উপর নির্ভর করে, তাই মাইটোকন্ড্রিয়া কর্মক্ষমতা তাদের জন্য অত্যন্ত গুরুত্বপূর্ণ। মাইটোকন্ড্রিয়া স্থির অর্গানেল নয়। তারা কোষের ভিতরে আকৃতি, আকার, সংখ্যা বা স্থানীয়করণ পরিবর্তন করে এবং সেলুলার চাহিদার সাথে খাপ খাইয়ে নিতে ফিউজ বা বিভাজন করার ক্ষমতা রাখে। তারা ইলেক্ট্রন ট্রান্সপোর্ট চেইন (ETC) এর মাধ্যমে ট্রাইকারবক্সিলিক অ্যাসিড চক্র (TCA) এবং অক্সিডেটিভ ফসফোরিলেশন (OXPHOS) এর মাধ্যমে শক্তি উত্পাদন করে। OXPHOS অ্যাক্টিভেশন ROS-এর দিকে নিয়ে যাবে, যার শারীরবৃত্তীয় স্তরে বিস্তৃত ফাংশন (পার্থক্য, অটোফ্যাজি, ইমিউন প্রতিক্রিয়া) রয়েছে [160] এবং অক্ষীয় পুনর্জন্ম [60]। তবুও, সুপ্রা-শারীরিক স্তরে, ROS ক্ষতিকারক কারণ তারা লিপিড, ডিএনএ এবং প্রোটিনের ক্ষতি করে। এই পরিবর্তনগুলি নিউরোডিজেনারেটিভ রোগ, এসসিআই এবং টিবিআই-এর সাথে যুক্ত করা হয়েছে। মাইটোকন্ড্রিয়া নিউরোনাল টিকে থাকার মূল নিয়ন্ত্রক হিসাবেও কাজ করে যা নিউরোনাল মৃত্যুকে সংশোধন করে এমন পথগুলিতে তাদের জড়িত থাকার মাধ্যমে।
সাইটোস্কেলটন, মোটর প্রোটিন এবং উপযুক্ত অ্যাডাপ্টর দ্বারা মাইটোকন্ড্রিয়া কোষের চারপাশে পরিবাহিত হয়। নিউরনে, তারা প্রধানত অ্যাডাপ্টার মিরো এবং মিল্টন/ট্রাফিকিং কাইনসিন-বাইন্ডিং প্রোটিন 1 (TRAK) প্রোটিন দ্বারা MTs এ ট্রাফিক করা হয় [161]। নিউরনের মধ্যে এই মাইটোকন্ড্রিয়া আন্দোলনগুলি সিন্যাপসেসের মধ্যে সর্বোত্তম ফিটনেস বজায় রাখতে, শক্তি উৎপাদন, Ca2 প্লাস বাফারিং ইত্যাদির জন্য অপরিহার্য। [162]। মাইটোকন্ড্রিয়া প্রায়শই ER-এর কাছাকাছি স্থানীয়করণ করে, মাইটোকন্ড্রিয়া-সম্পর্কিত ER মেমব্রেন বা মাইটোকন্ড্রিয়া-সম্পর্কিত মেমব্রেন (MAMs) গঠন করে। এই মেমব্রেন মাইক্রোডোমেনগুলি হল বিপরীতমুখী টিথার যা বিভিন্ন সেলুলার প্রক্রিয়া সহ-নিয়ন্ত্রিত এবং প্রভাবিত করে, যেমন, লিপিডের সংশ্লেষণ/পরিবহন, Ca2 প্লাস ডায়নামিক্স/সিগন্যালিং, অটোফ্যাজি, মাইটোকন্ড্রিয়াল আকৃতি এবং আকার, অ্যাপোপটোসিস এবং শক্তি বিপাক [163]। এমএএমগুলি AD, PD এবং ALS [164] এর মতো স্নায়বিক ব্যাধিতে পরিবর্তিত হয়। মাইটোকন্ড্রিয়া ATG-এর হাব হিসেবে কাজ করে, অটোফ্যাগোসোম গঠনের জন্য ঝিল্লি সরবরাহ করে এবং অটোফ্যাজিক ফ্লাক্স [165] মডিউলেটিং করে। মাইটোকন্ড্রিয়াও UPR(mt) ভুগে, এবং সক্রিয় পথের উপর নির্ভর করে, এটি কৃমি এবং ইঁদুরের বর্ধিত আয়ুষ্কালের সাথে যুক্ত করা হয়েছে [166], তবে এর অত্যধিক সক্রিয়তা নিউরোডিজেনারেশনের কারণ হয় [167]।
মাইটোকন্ড্রিয়াল কর্মহীনতা অপর্যাপ্ত সংখ্যক মাইটোকন্ড্রিয়া, তাদের প্রয়োজনীয় স্তর সরবরাহ করতে অক্ষমতা বা তাদের ইলেক্ট্রন পরিবহন এবং এটিপি-সংশ্লেষণ যন্ত্রপাতির কর্মহীনতা থেকে উদ্ভূত হয়। ROS এর উচ্চ মাত্রা এবং সম্পর্কিত প্রতিক্রিয়াশীল প্রজাতি (RNS) ডিমিউটেজ এনজাইম এবং অ্যান্টিঅক্সিডেন্টস দ্বারা নিরপেক্ষ করা যেতে পারে [168]। এই এনজাইমগুলির পরিবর্তন এবং নির্দিষ্ট মাইটোকন্ড্রিয়াল শ্বাসযন্ত্রের কমপ্লেক্সগুলি নিউরোডিজেনারেটিভ রোগ যেমন ALS এবং PD [169]-এ পরিলক্ষিত হয়েছে। মাইটোকন্ড্রিয়াল সংখ্যা এবং কার্যকারিতা মারাত্মকভাবে সেলুলার হোমিওস্ট্যাসিসকে ক্ষতিগ্রস্ত করে এবং রোগের সূত্রপাত ঘটায়। অতএব, কোষগুলি মাইটোকন্ড্রিয়াল বায়োজেনেসিস এবং ক্লিয়ারেন্সের বিরোধী প্রক্রিয়াগুলির মধ্যে একটি গতিশীল ভারসাম্য বজায় রাখার জন্য অনুসরণ করে। অকার্যকর মাইটোকন্ড্রিয়া জমা হওয়া এবং/অথবা এর বায়োজেনেসিস নষ্ট হওয়া কোষের মৃত্যু ঘটায়। নিউরোডিজেনারেশন প্রতিরোধের সাম্প্রতিক থেরাপিউটিক উপায়গুলির লক্ষ্য হল NAD প্লাস [170], এপিজেনেটিক চিহ্ন [171], বা মস্তিষ্কের সেরোটোনিন অক্ষকে মড্যুলেট করে [172] মাইটোকন্ড্রিয়াল বায়োজেনেসিসকে বৃদ্ধি করা। মাইটোফ্যাজি দ্বারা অকার্যকর মাইটোকন্ড্রিয়াল ক্লিয়ারেন্সও ফল দেয়নিউরোপ্রটেকশন. PTEN-প্ররোচিত কিনেস 1 (PINK1) এর অত্যধিক এক্সপ্রেশন, যা মাইটোফ্যাজি প্রক্রিয়া শুরু করার জন্য অপরিহার্য, এইচডি [45] এর একটি ফ্লাই মডেলে নিউরোনাল বেঁচে থাকা বাড়ায়। উপরন্তু, NAD প্লাস পরিপূরক PD [173] এর একটি পিঙ্ক1-মিউট্যান্ট মডেলে নিউরোটক্সিসিটি হ্রাস করে।
মাইটোকন্ড্রিয়া ফাংশন ROS এবং সেলুলার অ্যান্টিঅক্সিডেন্ট প্রতিক্রিয়ার সাথে ক্রস লিঙ্কযুক্ত। এইভাবে, ট্রান্সক্রিপশন ফ্যাক্টর নিউক্লিয়ার ফ্যাক্টর এরিথ্রয়েড-ডিরাইভড ফ্যাক্টর 2-সম্পর্কিত ফ্যাক্টর 2 (Nrf2) অক্সিডেটিভ স্ট্রেস এবং নিউরোইনফ্ল্যামেশনের বিরুদ্ধে লড়াই করার জন্য সাইটোপ্রোটেক্টিভ এবং ডিটক্সিফাইং জিনের প্রকাশকে নিয়ন্ত্রণ করে, যার লক্ষ্য স্নায়ু ক্ষতি কমানো। অতএব, নিউরোডিজেনারেটিভ রোগে রোগের অগ্রগতি বিলম্বিত করার জন্য এটি একটি কার্যকর ম্যানিপুলেশন হতে পারে [174-176]। ROS এর উদ্দীপনার অধীনে, Nrf2 কেলচ-এর মতো ECH-সংশ্লিষ্ট প্রোটিন (Keap1) থেকে বিচ্ছিন্ন করে, যার ফলে অ্যান্টিঅক্সিডেন্ট এনজাইমগুলির প্রকাশ নিয়ন্ত্রণ করে [177]। এটি বর্ণনা করা হয়েছে যে Keap1 p62 [178] এর সর্বব্যাপীতা মধ্যস্থতা করে। যখন Keap1 হ্রাস করা হয়, তখন p62 কোষে জমা হয় এবং সাইটোটক্সিসিটির কারণ হয়, যখন এর অত্যধিক এক্সপ্রেশন অটোফ্যাজি পথের মাধ্যমে p62 এর অবক্ষয়কে উৎসাহিত করে। অন্যদিকে, p62 অটোফ্যাজি পাথওয়ের মাধ্যমে Nrf2 কে সক্রিয় করে p62-কিপ1-Nrf2-অ্যান্টিঅক্সিডেন্ট রেসপন্সিভ এলিমেন্ট (ARE) পাথওয়ে তৈরি করে এবং ROS দ্বারা সৃষ্ট অক্সিডেটিভ ক্ষতির বিরুদ্ধে প্রতিরোধ করে [১৭৯]। অধিকন্তু, Nrf2 মাইটোকন্ড্রিয়াল বায়োজেনেসিসের নিয়ন্ত্রণে জড়িত নিয়ন্ত্রক লুপ গঠন করে। Nrf2 পারক্সিসোম প্রলিফেরেটর-অ্যাক্টিভেটেড রিসেপ্টর-গামা কোঅ্যাক্টিভেটর 1-আলফা (PGC-1 ) এবং নিউক্লিয়ার রেসপিরেটরি ফ্যাক্টর (NRF1) এর অভিব্যক্তি বাড়ায়, যা সরাসরি mtDNA ট্রান্সক্রিপশনের নিয়ন্ত্রণে জড়িত। অবশেষে, Nrf2 PINK1 এর অভিব্যক্তিকে নিয়ন্ত্রণ করে, যা মাইটোফ্যাজি আনয়নে একটি মূল ভূমিকা পালন করে [180], পরামর্শ দেয় যে কোষের অ্যান্টিঅক্সিডেন্ট ক্ষমতা মাইটোকন্ড্রিয়া অবস্থার উপরও প্রভাব ফেলে।
নিউরোডিজেনারেটিভ রোগগুলি Nrf2 পথের বাধা এবং অটোফ্যাজির কর্মহীনতার সাথে সম্পর্কিত, যা ROS, সেন্সেন্ট অর্গানেলস এবং মিসফোল্ড প্রোটিন [181,182] এর জমে যাওয়ার দিকে পরিচালিত করে। নিউরোডিজেনারেটিভ রোগগুলি প্রচুর প্রোটিন সমষ্টি এবং ROS এর সাথে সম্পর্কিত, যা p62-কিপ1-Nrf2 ইতিবাচক প্রতিক্রিয়া অক্ষকে প্ররোচিত করে, যা নিউরনের একটি প্রতিরক্ষামূলক প্রক্রিয়া [183,184]। AD পশুর মডেল এবং AD রোগীর মস্তিষ্কে Nrf2 এক্সপ্রেশন কম [185]। ARE-এর সাথে Nrf2 আবদ্ধ হওয়া রোগের অগ্রগতির সময় শীঘ্রই ঘটে, যা ROS উত্পাদন বৃদ্ধির সাথে মিলে যায় [186]। ROS জেনারেশন এবং A-মধ্যস্থিত ROS-প্ররোচিত বিষাক্ততা হ্রাস করে Nrf2 নিউরোপ্রোটেক্টস [187,188]। এইচডি-তে, মাইটোকন্ড্রিয়াল কমপ্লেক্স II এর একটি কর্মহীনতা রয়েছে, যার ফলে ROS [48] বৃদ্ধি পায়। এইচডির প্রাথমিক পর্যায়ে, একটি Nrf2 অ্যাগোনিস্টের সাথে চিকিত্সার ফলে অ্যাস্ট্রোসাইট এবং মাইক্রোগ্লিয়াতে Keap1–Nrf2–ARE এর মাধ্যমে অত্যাবশ্যক সাইটোপ্রোটেকটিভ জিন বৃদ্ধি পায় [189]। অ্যাস্ট্রোসাইটের ছোট অণু দ্বারা Keap1–Nrf2–ARE পথের সক্রিয়করণ অ-এক্সিটোটক্সিক গ্লুটামেট বিষাক্ততার প্রতি নিউরনের প্রতিরোধকে ত্বরান্বিত করে [46-48]। পরিবর্তিত মাইটোকন্ড্রিয়া ফাংশন, বায়োজেনেসিস এবং মাইটোফ্যাজি হল PD-তে গুরুত্বপূর্ণ প্যাথলজিকাল বৈশিষ্ট্য, এবং Nrf2 হল একটি গুরুত্বপূর্ণ ট্রান্সক্রিপশন ফ্যাক্টর যা মাইটোকন্ড্রিয়াল মান নিয়ন্ত্রণ এবং হোমিওস্ট্যাসিস [190] নিয়ন্ত্রণ করে। PD-তে, Nrf2-ARE সিস্টেমের একটি সক্রিয়তা রয়েছে [191,192] এবং এর ফার্মাকোলজিক্যাল অ্যাক্টিভেশন PD অগ্রগতি [49,50] প্রতিরোধ করে। Nrf2 অ্যাক্টিভেশন সুপারঅক্সাইড ডিসম্যুটেজ 1 (SOD1) মিউট্যান্ট প্রোটিন দ্বারা সৃষ্ট ROS এবং কোষের মৃত্যুর বিরুদ্ধে একটি প্রতিরক্ষামূলক ভূমিকা পালন করে। এছাড়াও, অ্যাস্ট্রোসাইট এনআরএফ 2 ওভার এক্সপ্রেশন এসসি এমএনগুলির বেঁচে থাকা বাড়ায় এবং এসওডি 1 ট্রান্সজেনিক ইঁদুর [51,52] এর জীবনকাল প্রসারিত করে। এছাড়াও, অটোফ্যাজির প্রসঙ্গে p62 এবং Keap1-Nrf2 পথের মধ্যে ক্রসস্টাল ROS অপসারণ, অক্সিডেটিভ ক্ষতি প্রতিরোধ এবং সেরিব্রাল ইসকেমিয়া-রিপারফিউশন আঘাতের সময় ইআর স্ট্রেসের পরিবর্তনে গুরুত্বপূর্ণ ভূমিকা পালন করতে পারে [53]।
সবশেষে, মাইটোকন্ড্রিয়া নিউরোনাল টিকে থাকার চালনা করে, কারণ তারা অভ্যন্তরীণ এবং বাহ্যিক মৃত্যুর সূচনাকারীকে অনুভব করে, যা মাইটোকন্ড্রিয়াতে একত্রিত হওয়া সিগন্যালিং ক্যাসকেডগুলিকে ট্রিগার করে এবং তারপরে এক বা একাধিক কোষের মৃত্যুর পথে পুনরায় বিচ্যুত হয় যা বিভিন্ন ধরণের কোষের মৃত্যুর দিকে পরিচালিত করে (যেমন অন্তর্নিহিত অ্যাপোপটোসিস) ) [193]।
4. টার্গেটিং সিস্টেমিক মড্যুলেশন
4.1। ক্যালোরি সীমাবদ্ধতা
ক্যালোরিক সীমাবদ্ধতা (CR) বিভিন্ন জীবের আয়ু বাড়ায় এবং বিভিন্ন অঙ্গে এর প্রতিরক্ষামূলক প্রভাব রয়েছে। সিআর সমগ্র জীবকে প্রভাবিত করে: পদ্ধতিগত পরিবেশ থেকে বিভিন্ন উপকোষীয় জনসংখ্যা পর্যন্ত। 2010 সালে, ক্রোমার এবং সহযোগীরা পরামর্শ দিয়েছিলেন যে CR সুবিধাগুলি SIRT1-নির্ভর অটোফ্যাজি [194] এর উপর নির্ভরশীল। অন্যদিকে, এটি নির্দেশ করা হয়েছে যে সিআর একটি ঘেরলিন-এএমপিকে অক্ষ দ্বারা পিডি রোগে নিউরোপ্রোটেক্টিভ, এএমপিকে অটোফ্যাজির একটি মূল প্রবর্তক [195]। দীর্ঘমেয়াদী CR বজায় রাখার সুস্পষ্ট অসম্ভবতার প্রেক্ষিতে, নতুন CR "mimetics" (CRM) আবিষ্কার করার জন্য থেরাপিউটিক আগ্রহ উত্থাপিত হয়েছিল, যা জীবের মধ্যে CR এর শারীরবৃত্তীয় প্রভাবকে অনুকরণ করে [196]। সিআর এবং সিআর-মিমেটিক্স উভয়ই অটোফ্যাজি ইনডাকশন [197] এর মাধ্যমে জ্ঞানীয় ফাংশন উন্নত করে এডি ইঁদুরের মডেলগুলিতে কার্যকারিতা পরীক্ষা করেছে, তাই তারা নিউরোডিজেনারেশনের চিকিত্সার জন্য অভিনব থেরাপিউটিক উপায়।
4.2। ব্যায়াম
শারীরিক ব্যায়াম প্যাথোফিজিওলজিকাল অবস্থা যেমন নিউরোপ্যাথিক ব্যথা কমাতে বা স্ট্রোক মডেলগুলিতে কার্যকরী ফলাফলগুলি উন্নত করার ক্ষমতার কারণে আগ্রহ অর্জন করছে [198]। এটি প্রদাহজনক প্রতিক্রিয়া এবং অ্যান্টিঅক্সিডেন্ট ভারসাম্য [199] বর্ধিত করে পিডি অগ্রগতিকে ধীর করে দেয়। এটি বর্ণনা করা হয়েছে যে ব্যায়াম নিউরোট্রফিক কারণগুলির অন্তঃসত্ত্বা মাত্রা বৃদ্ধি করে কাজ করে [200,201]। তদুপরি, এটি পেশী হরমোন নিঃসরণকে সংশোধন করে, মস্তিষ্কে প্রতিরক্ষামূলক প্রভাবকে প্রচার করে, নিউরোজেনেসিস এবং মস্তিষ্কের বার্ধক্য হ্রাস করে [202]। প্রকৃতপক্ষে, এটি সম্প্রতি বর্ণনা করা হয়েছে যে একই হরমোন, ইরিসিন, হাড় গঠনে ভূমিকা রাখে [203], ইঙ্গিত করে যে ব্যায়াম পুরো শরীরকে প্রভাবিত করে।
5. কার্যকরী নিউরোপ্রোটেক্টেন্ট খোঁজা: কি আছে এবং আমরা কোথায় যাই
নিউরোডিজেনারেটিভ রোগের সাধারণ বৈশিষ্ট্য হল ইউপিআর-এর অ-সঠিক সক্রিয়তা, অটোফেজিক প্রসেস জমা হওয়া, মাইটোকন্ড্রিয়াল ওয়েল-ফাংশন ব্যর্থতা ইত্যাদি। সর্বোপরি, তারা নিউরনকে অভিভূত করবে, তাদের মৃত্যুকে উস্কে দেবে। একটি কার্যকর নিউরোপ্রোটেক্ট্যান্টকে অবশ্যই বার্ধক্য/অপমানে সম্পূর্ণ স্থিতিস্থাপকতার সাথে কোষকে বাড়িয়ে দিয়ে এই প্রক্রিয়াগুলিকে সংশোধন করতে হবে। আমাদের কোষের মধ্যে আণবিক নেটওয়ার্ককে সম্পূর্ণরূপে পরিবর্তন করতে হবে, এটিকে কার্যকারিতা সম্পূর্ণ পুনরুদ্ধারের দিকে ঠেলে দিতে হবে। ALS [204]-এর জন্য রিলুজল-এর মতো অনুমোদিত ওষুধ, অথবা ALS [204]-এর জন্য Rapamycin, Spermidine এবং AD [205,206]-এর জন্য DH-এর মতো ক্লিনিকাল ট্রায়াল চলমান, শুধুমাত্র এই অবক্ষয়কারী প্রক্রিয়াগুলির মধ্যে একটিকে লক্ষ্য করে এবং নিউরন দ্বারা অভিভূত হয়। অন্যজন. যদিও তারা উপকারী প্রভাব ফেলতে পারে, আমরা শুধুমাত্র একটি টার্গেটের পরিবর্তে বিভিন্ন আণবিক পথ- মাল্টিটার্গেট থেরাপি-কে সমর্থন করার জন্য একটি জেনেটিক বা ফার্মাকোলজিকাল পদ্ধতির সন্ধান করার প্রস্তাব করছি।
SIRT1, BIP, এবং/অথবা ATG5-এর মতো নির্দিষ্ট প্রোটিনের নির্দিষ্ট মাত্রাতিরিক্ত এক্সপ্রেশন স্নায়ুর আঘাতের পরে নিউরোনাল বেঁচে থাকার সুবিধা দেয় এবংনিউরোপ্রটেকশননিউরোডিজেনারেটিভ রোগে। তারা প্রধানত ইউপিআর বা অটোফ্যাজি নেটওয়ার্কগুলিকে সূক্ষ্ম সুর করে। ট্রান্সজেনিক মাউস বা ভাইরাল ভেক্টর ব্যবহার করে SIRT1 অ্যাক্টিভেশন বিভিন্ন নিউরোডিজেনারেটিভ রোগ যেমন ALS, AD, এবং HD [207-209] এবং স্নায়ুর আঘাতের পরেও সুরক্ষা প্রদর্শন করেছে [55]। SIRT1 deacetylase কার্যকলাপ সুরক্ষার বিভিন্ন অন্তঃসত্ত্বা প্রক্রিয়াকে সমর্থন করে: অটোফ্যাজি, PERK কমিয়ে ইউপিআরকে মডিউল করে, এবং ATF6 ক্লিভেজ [23,210] বৃদ্ধি করে, অ্যান্টি-অ্যাপোপ্টোটিক প্রভাব রয়েছে এবং অ্যানোকিস [211,212] বাধা দেওয়ার জন্য AKT কার্যকলাপ মডিউল করে। অতএব, এর সুনির্দিষ্ট মড্যুলেশন সেলুলার স্থিতিস্থাপকতা বাড়াতে পারে। আমাদের সাম্প্রতিক গবেষণা থেকে, আমরা উপসংহারে পৌঁছেছি যে সেলুলার স্থিতিস্থাপকতা [54,55] অর্জনের জন্য আণবিক নেটওয়ার্কের জন্য SIRT1 ডিসিটাইলেজ ক্রিয়াকলাপ সংশোধন করা একটি অপরিহার্য নোড। সবশেষে, বিআইপি ওভার এক্সপ্রেশন সমষ্টির বিরুদ্ধে সুরক্ষা দেয় এবং অটোফ্যাজি এবং মাইটোফ্যাজিকে প্ররোচিত করে [৯৯], তাই এর মড্যুলেশনও বিভিন্ন নিউরোপ্রোটেক্টিভ পাথওয়ে ক্লাস্টার করার জন্য একটি কার্যকর পদ্ধতি।
6. সমাপনী মন্তব্য
এর অন্তঃসত্ত্বা মেকানিজম বুস্টিংনিউরোপ্রটেকশননিউরোডিজেনারেটিভ রোগের চিকিৎসা বা নিউরো-ট্রমার পরে টিস্যু হোমিওস্ট্যাসিস বজায় রাখার জন্য উত্তেজনাপূর্ণ থেরাপিউটিক উপায়গুলি খুলে দেয়। যদিও এটি আজকাল একটি অনাবিষ্কৃত ক্ষেত্র, এটি একটি কংক্রিট প্যাথোফিজিওলজিকাল হলমার্ক ব্লক করার চেয়ে আরও কার্যকর বায়োমেডিকাল ফলাফল প্রচার করতে পারে। অতএব, জেনেটিক, ফার্মাকোলজিকাল, বা সিস্টেমিক-মডুলেশন থেরাপির দ্বারা তাদের সমর্থন করা প্যাথলজির অগ্রগতি বিলম্বিত করতে পারে এবং কার্যকরী পুনরুদ্ধারকে উন্নত করতে পারে। সর্বোত্তম থেরাপিউটিক কৌশলটি অবশ্যই সম্পূর্ণ নেটওয়ার্ককে পুনরায় মডেল করতে এবং সুরক্ষা অর্জন করতে সুরক্ষার অন্তঃসত্ত্বা মেকানিজমগুলির একটি কংক্রিট মড্যুলেশন অন্তর্ভুক্ত করতে হবে।
লেখকের অবদান: ডিআর-জি। এবং SM-M.-A. পাণ্ডুলিপি লিখেছেন এবং সিসি একটি সমালোচনামূলক পর্যালোচনা করেছেন। সমস্ত লেখক পাণ্ডুলিপির প্রকাশিত সংস্করণ পড়েছেন এবং সম্মত হয়েছেন।
তহবিল: এই গবেষণা কোন বহিরাগত তহবিল পায়নি।
ডেটা উপলব্ধতা বিবৃতি: এই গবেষণায় কোনও নতুন ডেটা তৈরি বা বিশ্লেষণ করা হয়নি। ডেটা শেয়ারিং এই নিবন্ধের জন্য প্রযোজ্য নয়।
স্বার্থের দ্বন্দ্ব: লেখকরা কোন স্বার্থের দ্বন্দ্ব ঘোষণা করেন না।